
Accurate site-specific folding via conditional diffusion based on AlphaFold3
原文链接:全文
作者:Haocheng Tang, Junmei Wang
Proceedings of the National Academy of Sciences,2025 年 11 月 4 日
AlphaFold3 能预测蛋白质与几乎任何生物分子的复合物结构,但它有一个显著弱点:对特定结合位点的预测精度不够。尤其是孤儿蛋白(MSA 信息少)和变构配体(结合位点远离正构口袋),AF3 经常把配体放错位置。
匹兹堡大学 Junmei Wang 团队在 AF3 的基础上提出了 SiteAF3——核心思路很直接:固定受体结构,只在指定结合口袋附近做配体的条件扩散,同时通过 MSA 模块注入口袋和热点残基信息。无需重新训练整个模型,只微调扩散模块,就能让 AF3 的预测精度全面提升。
一、研究问题
AF3 已经在预测生物分子复合物结构方面取得了巨大进展,但仍然存在三个核心局限:
局限 1:强烈依赖 MSA 质量
AF3 的表现很大程度上取决于多序列比对(MSA)的质量。对于孤儿蛋白(同源序列少、MSA 稀疏)或MSA 含噪声的情况,预测精度会明显下降。
局限 2:变构结合位点预测困难
AF3 的 cofolding 模式在预测变构配体(allosteric ligand)的结合位置时表现不佳。模型倾向于将配体放在正构口袋附近,难以准确识别远端的变构位点。
局限 3:结合界面精度和计算成本
即使蛋白整体折叠正确,结合界面的原子级精度仍有改进空间。同时 AF3 对大型复合物的 GPU 显存消耗较高,conformational sampling 的效率也不够,限制了高通量虚拟筛选的应用。
作者因此提出的核心问题是:能否在不改变 AF3 整体架构的前提下,通过修改扩散过程和信息注入方式,显著提升特定结合位点的预测精度?
二、方法核心
SiteAF3 在 AF3 的基础上做了两个关键改动,加了一个「位置更新」模块:
改动 1:条件扩散(Conditional Diffusion)
AF3 的扩散模块会同时对所有原子加噪声再去噪。SiteAF3 的做法不同:固定受体结构,只对配体原子做扩散。
具体操作:配体原子的初始坐标围绕口袋中心(pocket center)做高斯初始化,受体原子坐标直接固定。噪声只加在配体上,去噪也只更新配体。口袋中心还施加一个小扰动(2 Å 半径球内),增加采样多样性。初始点云还经历随机旋转和平移,保证输出的鲁棒性。
这样做的好处是搜索空间大幅缩小——模型只需要在受体的特定口袋内探索配体构象,同时受体提供稳定的结构上下文。
改动 2:MSA 口袋信息注入
AF3 的 MSA 模块用遗传搜索找到全长同源序列作为模板。SiteAF3 额外引入了口袋掩码(pocket masking)和热点残基标注(hotspot)。
口袋信息怎么进入模型?作者的方法很巧妙:把口袋序列和热点序列拼接到遗传搜索得到的 MSA 模板之后,通过 AF3 自带的 Pair Former 做对齐。这样 MSA 模块就知道了「哪些残基构成结合口袋」和「哪些残基是关键热点」。
作者测试了五种配置模式:完整(AF3 MSA + pocket + hotspot)、只用 AF3 MSA、只用 pocket + hotspot、只用 baseline、以及原版 AF3。在不同数据集上,pocket masked AF3 MSA 与 AF3 MSA + pocket + hotspot 交替取得最佳结果。
辅助模块:Position Update
由于 SiteAF3 只更新配体坐标,需要一个模块将固定的受体结构和更新后的配体结构无缝拼合成完整复合物。在第二个 sequence local attention 模块之后引入 mask,确保矩阵乘法只作用于配体的 two-pair embedding,显著降低 GPU 显存占用。
整个流程可以用一句话总结:给已知受体结构 + 给定口袋位置,让 AF3 的扩散模块专注在这个口袋里「画」出配体的正确构象。
三、看图说话
Figure 1 · SiteAF3 架构
这张图想回答:SiteAF3 在 AF3 基础上改了什么?
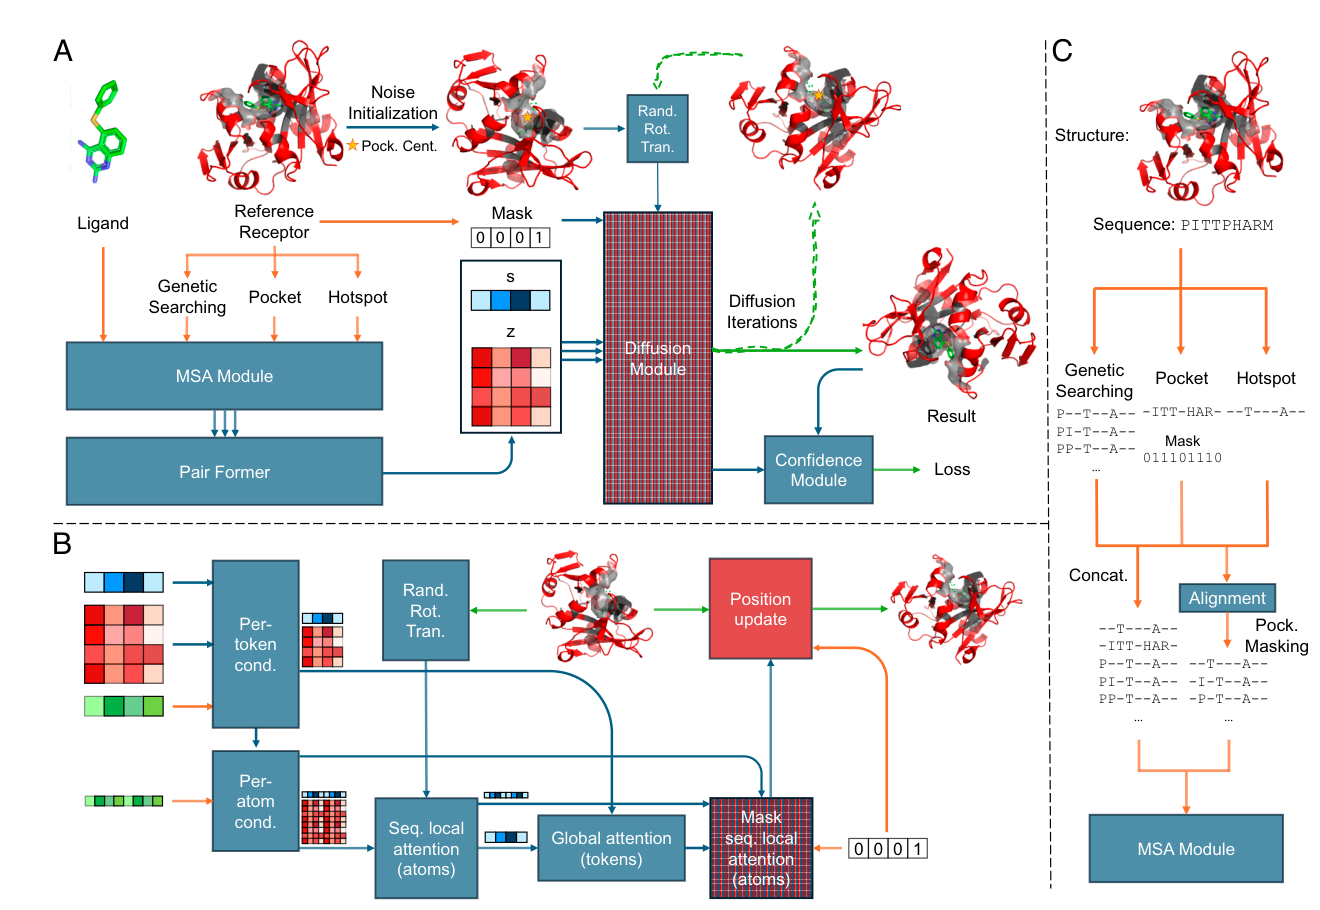
Figure 1. (A) SiteAF3 推理流程总览。红色模块为新增部分。(B) 条件扩散模块细节。(C) MSA 输入准备——口袋序列和热点序列拼接方式。
怎么读这张图
- Panel A(总流程):绿色点云代表配体原子,围绕口袋中心(黄色星号)做高斯初始化。红色框标出的「Diffusion Module」和「Confidence Module」是微调的模块,蓝色框是继承自 AF3 的模块。配体经过多轮扩散迭代后输出预测构象,再由 Confidence Module 给出置信度打分。
- Panel B(扩散模块内部):注意中间有一个 mask——在第二个 sequence local attention 模块之后,通过 mask 只让配体的 token 参与矩阵更新。这既保证了受体结构固定,也降低了计算量。
- Panel C(MSA 准备):左半边展示口袋和热点序列怎么拼接到遗传搜索模板之后。右半边展示口袋掩码的编码方式(0/1 标记哪些残基属于口袋)。
读图结论:SiteAF3 的核心设计思路是「已知受体 + 指定口袋 → 条件扩散配体」。这是 docking 式的问题设定,但用的是 cofolding 的模型架构。在不改变 AF3 主体网络的前提下,通过修改扩散初始化、加 mask、注入口袋信息三步,把一个「全局 cofolding」问题转化为「局部 site-specific folding」问题。
Figure 2 · 蛋白-小分子预测结果
这张图想回答:SiteAF3 预测小分子结合构象比 AF3 好多少?
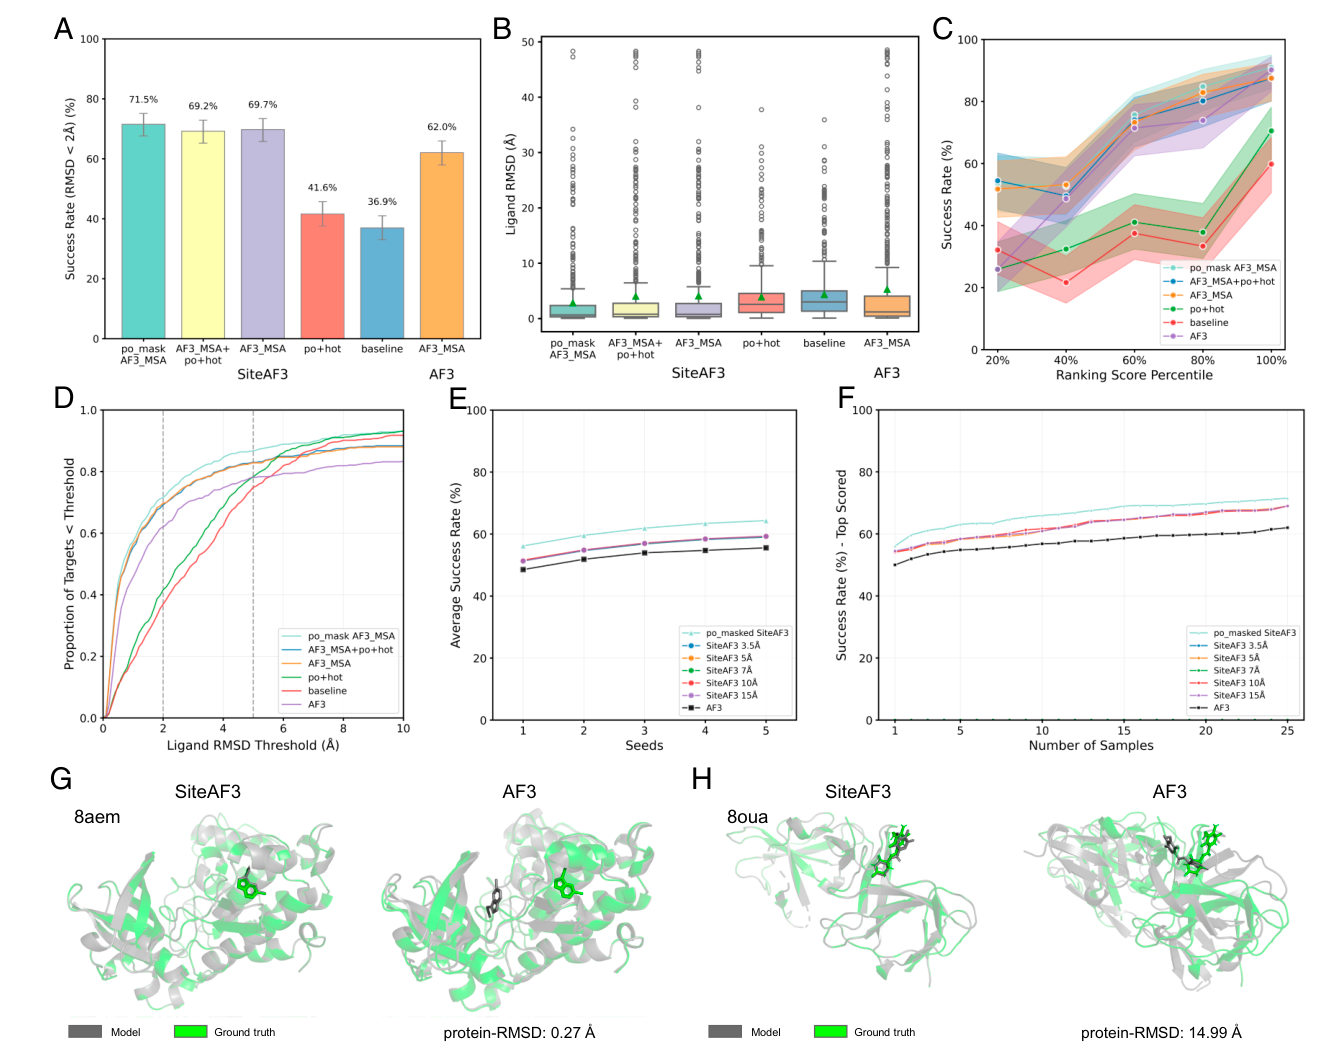
Figure 2. FoldBench 蛋白-小分子数据集上的预测结果(N=558)。
怎么读这张图
- Panel A(柱状图):不同模式的成功率(LRMSD < 2 Å)。SiteAF3 最佳模式 pocket masked AF3 MSA 达到 71.6%,AF3 为 62.0%。
- Panel B(箱线图):SiteAF3 各模式的 LRMSD 分布明显低于 AF3。
- Panel C(排名-成功率曲线):按 ranking score 排序后的累积成功率。排名靠后(置信度低)的预测中,SiteAF3 的优势更显著——底部 20% 低置信结构的成功率提升最大,高置信结构上与 AF3 相当。
- Panel D(CDF 图):0 到 10 Å 范围内的 LRMSD 累积分布,SiteAF3 全范围优于 AF3。
- Panel E-F:不同 seed 和采样数量对成功率的影响。增加采样数量可以持续提升性能。
- Panel G-H:两个案例研究。8aem(CK2alpha + LVF):AF3 正确生成蛋白结构但把配体放到了正构位点,SiteAF3 准确预测了变构结合位点。8oua(cereblon isoform 4 + 11F 肽):AF3 连受体蛋白结构都没生成对(protein-RMSD 14.99 Å),SiteAF3 成功对接(protein-RMSD 0.27 Å)。
读图结论:SiteAF3 的最大价值体现在两类 AF3 最容易失败的场景——变构配体和孤儿蛋白。案例 8aem 说明口袋信息可以直接引导配体到正确的变构位点;案例 8oua 说明固定已知受体结构可以绕过 AF3 在蛋白折叠阶段的失败。
Figure 3 · 蛋白-多肽预测结果
这张图想回答:SiteAF3 对柔性更强的多肽配体效果如何?
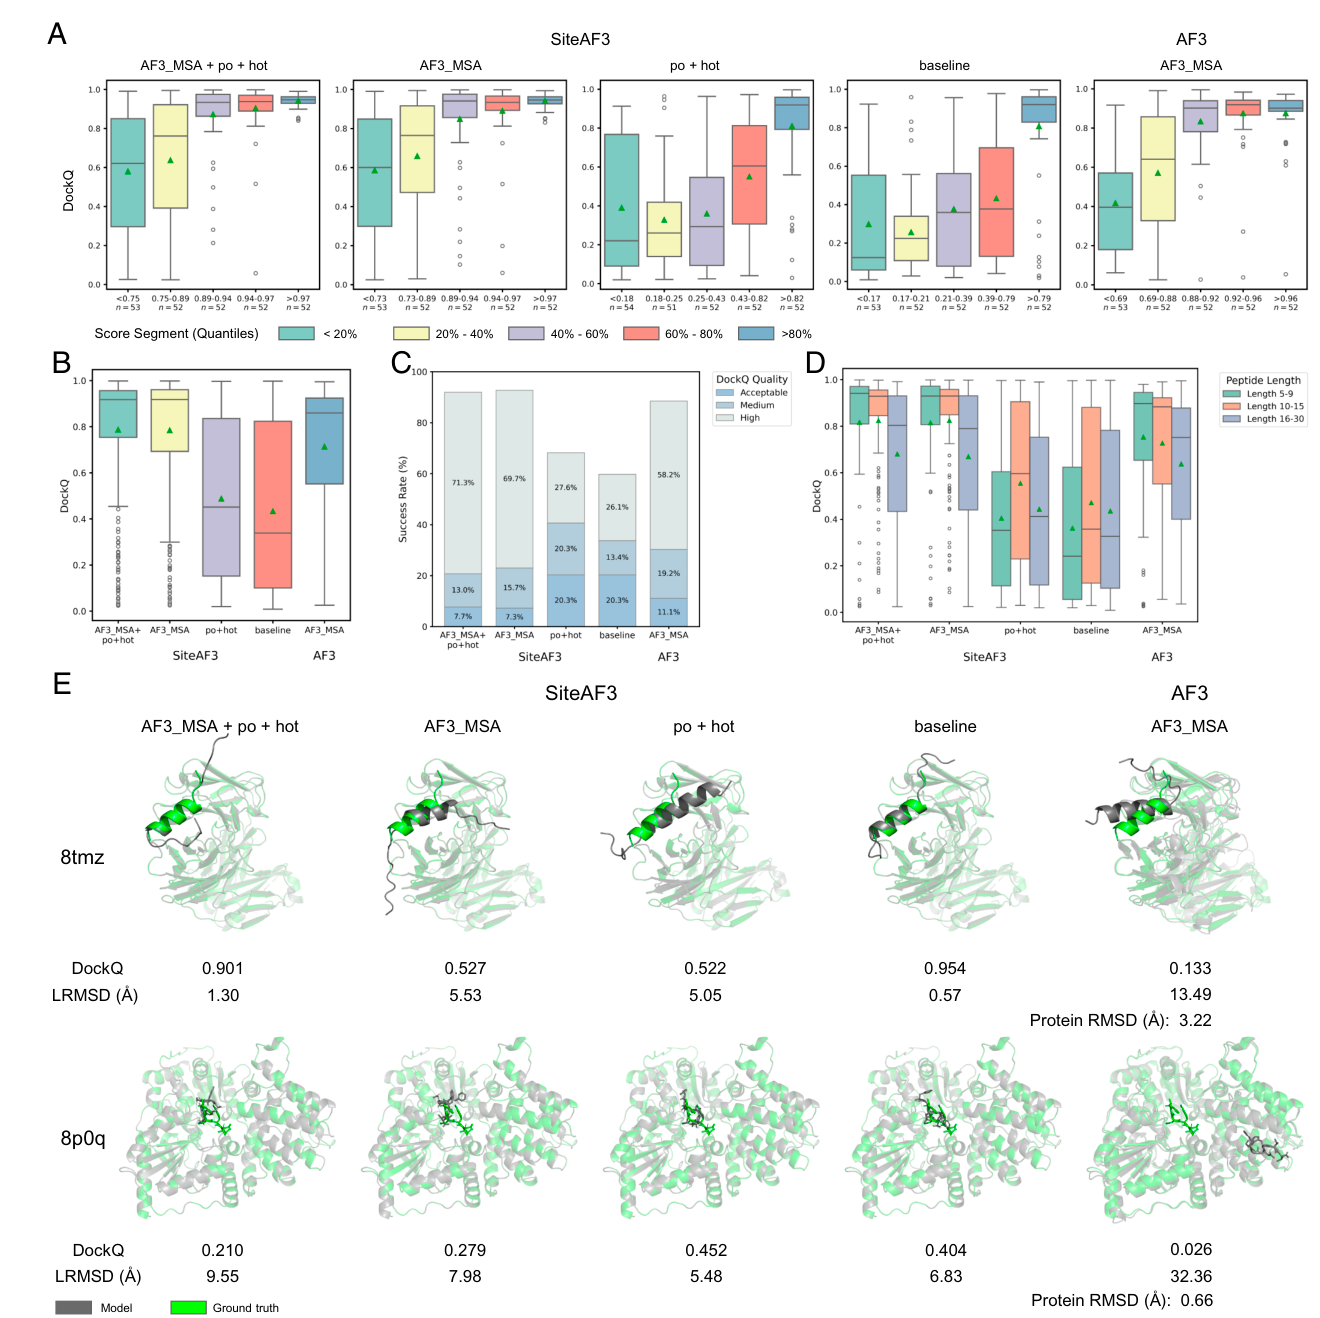
Figure 3. PepPCBench 蛋白-多肽数据集上的 DockQ 结果(N=261)。
怎么读这张图
- Panel A(箱线图):按置信度分段后的 DockQ 分布。SiteAF3 在各个分段上都高于 AF3,尤其是低置信预测(底部 40%),SiteAF3 的提升幅度更大。
- Panel B(整体 DockQ):SiteAF3 最佳模式的 mean DockQ 为 0.79,AF3 为 0.71(提升 11.2%);median DockQ 为 0.92 vs 0.86。
- Panel C(DockQ 质量分级):SiteAF3 的「High」质量预测占比达 69.7%(AF3_MSA+po+hot 模式),显著高于 AF3。
- Panel D:按多肽长度分组。短肽(5-9 残基)提升最明显,长肽(16-30 残基)差异最小。这与直觉一致——短肽的构象分布更集中,以口袋中心为原点做初始化效果更好。
- Panel E(案例):上排 8tmz(MERS-CoV spike + 抗体 CHM-27),SiteAF3 成功对接,AF3 生成了错误的抗体结构;下排 8p0q(AaNGT + 多肽),SiteAF3 对接正确,AF3 折对了蛋白但找到了错误的结合位点。
读图结论:SiteAF3 对短多肽的提升最显著。这也暗示了一个局限——当配体的空间尺度超过口袋半径太多时,以口袋中心为原点的噪声初始化就不再理想。
Figure 4 · 蛋白-核酸预测结果
这张图想回答:SiteAF3 对核酸复合物的预测表现如何?
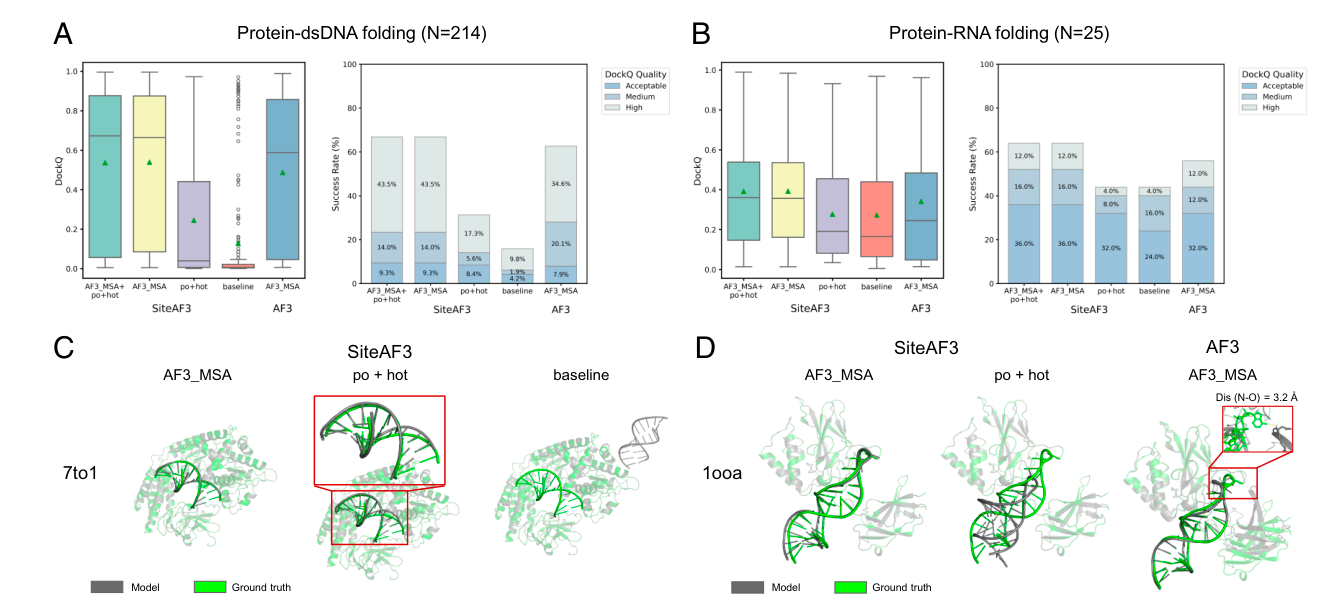
Figure 4. 蛋白-dsDNA(N=214)和蛋白-RNA(N=25)数据集上的 DockQ 结果。
怎么读这张图
- Panel A(蛋白-dsDNA):SiteAF3 AF3_MSA 模式的 mean DockQ 提升 10.2%,median DockQ 提升 13.6%。成功率(High DockQ)从 AF3 的 7.9% 提升到 16.8%。口袋和热点信息的加入也有助于让 dsDNA 放到正确的结合位点。
- Panel B(蛋白-RNA):样本量较小(N=25)。SiteAF3 AF3_MSA 模式的 mean DockQ 提升 14.7%,median DockQ 提升 44.0%。但绝对数值仍然偏低(mean DockQ ~0.39),说明蛋白-RNA 复合物仍然是一个挑战。
- Panel C(案例 7to1):RIG-I + p3SLR30 dsDNA。SiteAF3 AF3_MSA 模式成功,po+hot 模式和 baseline 模式把 dsDNA 放到了正确的结合位点但碱基配对有偏移。只有完整利用遗传搜索模板信息的 AF3_MSA 模式才能准确预测核酸精细结构。
- Panel D(案例 1ooa):NF-κB p50/2 + RNA aptamer。SiteAF3 AF3_MSA 成功对接,但注意到一个细节:RNA 中某个碱基的朝向(N-O 距离 3.2 Å)与实验结构有微妙差异。po+hot 模式虽然找到了正确位点,但蛋白中一个区域发生了不正确的构象变化。
读图结论:核酸复合物是 SiteAF3 收益相对最小的场景。作者自己也承认,核酸分子的尺寸较大,不太适合以口袋中心为原点的噪声初始化。核酸的结合界面通常是延展的面接触,以一个点为中心做高斯初始化难以覆盖整个界面。
四、核心贡献总结
跨模态 Benchmark 汇总
| 任务 | 数据集 | 指标 | SiteAF3 最佳 | AF3 |
|---|---|---|---|---|
| 蛋白-小分子 | PoseBustersV2 (N=308) | % RMSD ≤ 2 Å | 81.2% | 73.1% |
| 蛋白-小分子 | FoldBench (N=558) | % RMSD < 2 Å | 71.6% | 62.0% |
| 蛋白-多肽 | PepPCBench (N=261) | mean / median DockQ | 0.79 / 0.92 | 0.71 / 0.86 |
| 蛋白-dsDNA | FoldBench (N=214) | mean / median DockQ | 0.55 / 0.71 | 0.49 / 0.59 |
| 蛋白-RNA | AF3 数据集 (N=25) | mean / median DockQ | 0.39 / 0.36 | 0.34 / 0.25 |
最值得关注的发现
1. 变构结合物和辅因子上的优势最突出
作者专门评估了 14 个变构配体复合物(5 个在 AF3 训练集内、9 个未见过)。SiteAF3 在 pocket-masked AF3 MSA 模式下,mean RMSD 只有 AF3 的约三分之一,median RMSD 仅为五分之一。对 10 个辅因子复合物,也表现出一致优势。这说明口袋引导对于多结合位点蛋白特别有价值。
2. 低置信预测的提升更明显
在 FoldBench 上,SiteAF3 对排名分数底部 40% 的预测提升显著,而顶部 20% 的预测和 AF3 差距不大。这意味着 SiteAF3 的核心价值在于「救活」AF3 本来做不好的困难案例,对已经容易的靶标帮助有限。
3. 计算成本显著降低
作者在 RTX 6000 Ada(48 GB)上训练和测试。AF3 在处理大型系统(token 数超过约 3500)时容易出现显存溢出。SiteAF3 通过 mask 机制只更新配体相关的 embedding,显著降低了显存需求。不使用遗传搜索的模式(po+hot)还可以绕开耗时的 MSA 构建步骤,进一步加速。
4. MSA 模板有时会引入误导
一个反直觉的发现:在 FoldBench 上(数据不在 AF3 训练集中),pocket masked AF3 MSA 模式表现最好,但在 PoseBustersV2(数据在 AF3 训练集中)上,AF3_MSA + po + hot 更好。这暗示 AF3 的遗传搜索在未见数据上可能过拟合训练集中的模板信息,用 pocket masking 过滤掉全长 MSA 中与结合位点无关的噪声反而更优。
创新与局限
5 个创新点
1. 首次提出在 AF3 推理阶段做条件扩散——固定受体、只扩散配体
2. 通过 MSA 拼接方式将口袋和热点信息无缝注入 AF3 的表征学习
3. 作为 AF3 的轻量级插件,安装简单、兼容性好
4. 跨模态统一:同一框架处理小分子、多肽、DNA、RNA 四种配体类型
5. 显著降低 GPU 显存需求,为高通量虚拟筛选开路
4 个局限
局限 1:噪声初始化策略以口袋中心为原点做高斯分布,对界面延展的大分子(核酸、大型多肽)不够理想。作者建议未来开发自适应的初始化策略。
局限 2:目前不支持共价对接。处理共价抑制剂需要建模共价键的形成,这需要扩展模型架构。
局限 3:受体结构被视为完全刚性固定。在实际结合过程中,口袋附近的残基(key residues、loop regions)常常会发生构象调整。未来可以考虑引入局部柔性模块。
局限 4:SiteAF3 依赖 AF3 框架,而 AF3 本身并非完全开源。其口袋引导功能与 AF3 内部尚未公开的 pocket-guided prediction 功能的关系不够清晰,两者的性能差异值得关注。
值得后续关注的问题
1. 条件扩散的思路能否迁移到其他 cofolding 模型?Boltz、Chai、Protenix 等开源模型也有类似的扩散模块,SiteAF3 的口袋导航思路理论上是通用的。
2. 核酸复合物需要怎样的初始化策略?当前以点为中心的高斯初始化对延展的核酸界面效果有限,可能需要沿界面面分布的初始化方式。
3. 能否结合分子动力学做受体柔性建模?当前受体完全刚性的假设在药物设计场景下是一个明显限制。
4. 高通量虚拟筛选的实际表现如何?论文展示了计算成本的降低,但尚未做大规模虚拟筛选的端到端验证。
一句话总结:SiteAF3 的核心贡献是把 AF3 从「给我序列,我猜结构」升级为「给我受体 + 结合口袋,我精确预测配体构象」。这个思路简洁有效——固定已知信息、聚焦未知部分、注入先验知识——是一条提升 cofolding 模型实用性的清晰路线。
论文:Accurate site-specific folding via conditional diffusion based on AlphaFold3
作者:Haocheng Tang and Junmei Wang
机构:University of Pittsburgh, School of Pharmacy
DOI:10.1073/pnas.2521048122
通讯作者
Junmei Wang(王君梅),匹兹堡大学药学院药物科学系副教授,同时担任匹兹堡大学计算化学基因组筛选中心(CCGS)研究员。他在北京大学获得博士学位,随后在加州大学旧金山分校(UCSF)Peter Kollman 实验室做博士后研究。加入匹兹堡大学之前,他曾在德州大学西南医学中心担任副教授。Wang 教授是 AMBER 分子力场的长期核心开发者,参与开发了 FF99、GAFF/GAFF2 等广泛使用的力场及 Antechamber 模块。近年来他的研究方向扩展到 AI 驱动的药物设计,主持 NIH R01 资助的新一代 GAFF3 力场开发项目和 AI 辅助偏向性配体设计项目。他的研究涵盖计算化学与生物物理、药物发现与开发、以及系统药理学等领域。Google Scholar 引用超过 36,000 次,h-index 66。
引用
Tang, H., & Wang, J. (2025). Accurate site-specific folding via conditional diffusion based on AlphaFold3. Proceedings of the National Academy of Sciences, 122(44), e2521048122. https://doi.org/10.1073/pnas.2521048122