
AE-PocketMiner Uses Attention to Simultaneously Predict Cryptic Pockets and Their Allosteric Coupling
原文链接:全文
作者:Si Zhang, Prajna Mishra, Devin Kelly, Rachit Kumar, Gregory R. Bowman
bioRxiv,2026 年 5 月 23 日
很多蛋白在晶体结构里表面平坦,看起来无处下手,于是被贴上”不可成药”的标签。但蛋白是会动的:在概率较低的构象里,表面可能短暂裂开一个凹槽,这就是隐蔽口袋(cryptic pocket)。找到它,等于给一大批难成药靶点重新开了一扇门。
过去几年 AI 已经能从单个结构秒级预测”口袋可能在哪”,但两个更要命的问题没人回答:这个口袋跟蛋白功能有关系吗?哪些残基在远程控制它的开合?没有这两个答案,预测出来的口袋很难变成真正的药物开发动作。
宾夕法尼亚大学 Bowman 课题组给出的方案是 AE-PocketMiner(attention enabled PocketMiner):在原 PocketMiner 的几何图神经网络后面接一个两头多头自注意力模块,让模型在预测某个残基时可以”看向”全蛋白的每一个残基。输出因此有两套:每个残基的隐蔽口袋概率,以及残基之间的注意力分数——后者被用作候选的变构耦合关系。
结果相当硬:在 CryptoBank 的 18,250 个 apo 结构上召回率从 56.7% 提到 76.0%;在膜蛋白 CB1 上 30 个已知口袋残基命中 29 个;在 δ-secretase 上预测出一个此前没人报道过的隐蔽口袋,并用硫醇标记实验拿到了证据;在埃博拉病毒 VP35 上,模型挑出的两个残基经突变后,实验测得的口袋开放比例分别为 67.0%(V327A)和 28.6%(E262A),野生型为 25.2%。
一、研究问题
隐蔽口袋值钱在哪
实验方法解出的结构,报告的通常是蛋白最可能的那几个构象。隐蔽口袋恰恰躲在低概率构象里,于是在晶体结构里”不存在”。这一点造成的后果非常具体:
给”不可成药”蛋白开口子。很多靶点被判死刑,理由就是实验结构上找不到足够凹、足够能让小分子拿到亲和力和选择性的位点。隐蔽口袋是绕过这条判决的主要路径,KRAS G12C 抑制剂就是最著名的先例。
解决选择性。有些蛋白家族共享一个高度保守的正构口袋,打这个口袋必然脱靶。家族成员各自独有的隐蔽口袋反而是做选择性的好去处。
做变构调控。结合在功能位点上通常只能抑制功能。如果能结合一个远离功能位点、但变构控制它的隐蔽口袋,就有机会做出抑制之外的效果,包括增强某些有益功能。
二、方法核心:在几何图网络上接一层全局注意力
三、看图说话
全文四张主图是一条清晰的递进线:图 1 讲模型怎么工作 → 图 2 问能不能泛化到完全陌生的膜蛋白 → 图 3 问能不能发现全新口袋 → 图 4 问能不能设计出控制口袋开合的突变。
Figure 1 · 模型架构:从结构到两套输出
这张图想回答:AE-PocketMiner 怎样从一个输入结构同时预测隐蔽口袋位置和变构耦合关系?
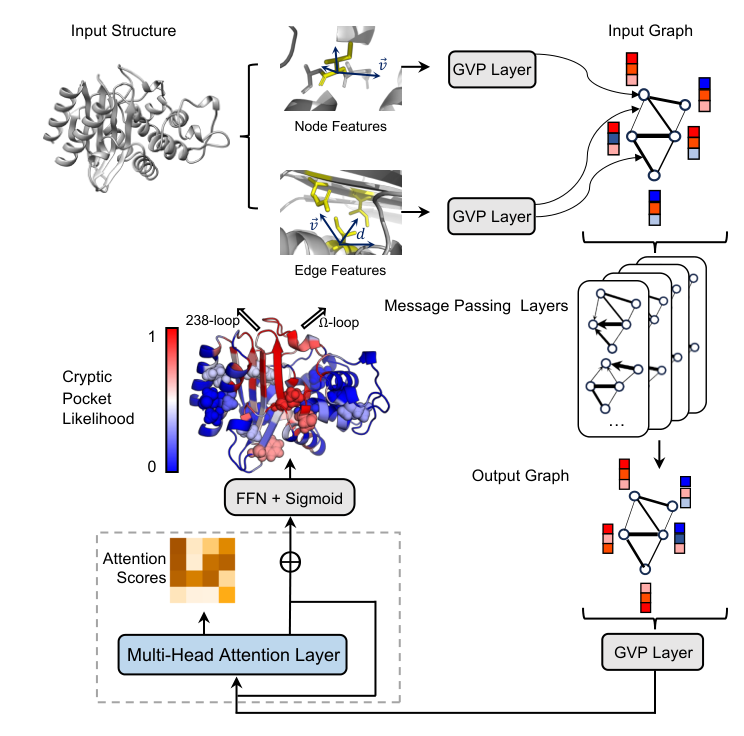
Figure 1. AE-PocketMiner 架构。输入结构转成残基图,节点与边特征经 GVP 层和 4 层消息传递,再进入灰色虚线框内的两头注意力模块(含层归一化与残差连接),最后经 FFN + sigmoid 输出每残基的隐蔽口袋概率;注意力分数矩阵单独取出。
怎么读这张图
左上:输入的蛋白三维结构。可以是晶体结构、冷冻电镜结构,原则上高质量预测结构也可以。模型不需要先跑长时间模拟。
中上:节点特征(黄色高亮的单个残基,蓝色箭头是方向向量)和边特征(两个残基之间的距离 d 与方向向量)分别送进 GVP 层,构成右上角的输入图。
右侧:叠在一起的四个图代表 4 层消息传递,每层让残基表示吸收邻居信息,往下是输出图。
左下灰色虚线框:新增的多头注意力层。橙色方块矩阵就是注意力分数,⊕ 表示残差连接,再往上经 FFN + Sigmoid 出结果。
左中的彩色蛋白:一个预测示例。颜色从蓝(概率 0)到红(概率 1)表示每个残基的隐蔽口袋概率。两个黑色箭头指向一个已知口袋的位置——在开放态,Ω-loop 和相邻的 238-loop 上的红色残基会移开,让口袋张开。以球形显示的 15 个残基,是注意力分数判定与该口袋耦合最强的残基。
这张图传递的核心信息是:同一次前向推理,同时给出”口袋在哪”和”谁可能在远程控制它”。前者来自 sigmoid 输出头,后者来自注意力矩阵,两者共享同一套表示。
Figure 2 · CB1:训练集里几乎没见过的膜蛋白
这张图想回答:模型能不能泛化到膜蛋白?它的注意力能不能指出远处控制口袋的残基?
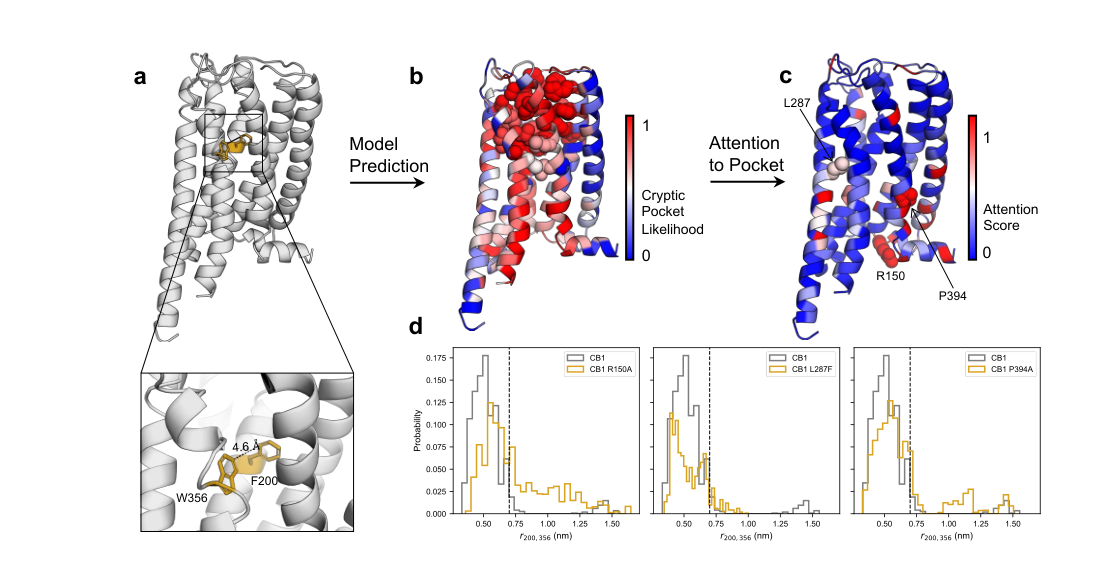
Figure 2. (a) 口袋关闭的 CB1 晶体结构(PDB 6N4B),金色为开关残基 F200 与 W356。(b) 按隐蔽口袋概率着色,球形为开放结构中距配体 VIP36 5 Å 以内的口袋残基。(c) 按相对该口袋的注意力分数着色,R150、L287、P394 被选去做计算突变。(d) 野生型与三个突变体的 F200–W356 距离分布,虚线为开放结构中的 7 Å。
怎么读这张图
测试对象:大麻素受体 CB1 是一个 GPCR。训练集的 124 个蛋白里有 123 个是可溶蛋白,唯一的膜蛋白 CH25H 和 CB1 没有结构同源性,所以这是一次真正的外推测试。
- Panel a:口袋关闭时,F200 与 W356 两个侧链只隔约 4.6 Å;口袋被配体撑开后约 7 Å。作者用这两个残基的距离作为口袋开合的指标。
- Panel b:已知口袋共 30 个残基,模型给其中 29 个的概率都超过 0.5,只有口袋边缘的 S390 偏低;原版 PocketMiner 还多漏了两个。模型在 CB1 另一侧也标出一个候选口袋,本文没有展开。
- Panel c:着色换成”预测这个口袋时,模型把注意力投向了谁”。序列上紧挨口袋的残基天然注意力高,被排除(显示为蓝色)。作者从高分残基里挑了三个:离口袋较近的 P394、L287,以及远在蛋白另一端的 R150。
- Panel d:分子动力学模拟中,曲线向右移表示口袋更常打开。P394A(位于保守的 NPxxY 基序,TM7 上)让分布右移;L287F 让分布左移,这个位置在对 VIP36 不敏感的 CB2 里本来就是苯丙氨酸;R150A 也显著促进开放,而它被选中几乎完全是因为注意力分数高。
这张图说明两点:模型能泛化到训练中几乎没出现过的膜蛋白;注意力分数能提出此前没有理由怀疑的远程变构残基。需要注意,panel d 的验证全部来自模拟,没有湿实验。
Figure 3 · δ-secretase:发现一个全新的隐蔽口袋
这张图想回答:模型能否在一个没有已知隐蔽口袋的蛋白上发现新口袋,并用实验验证?
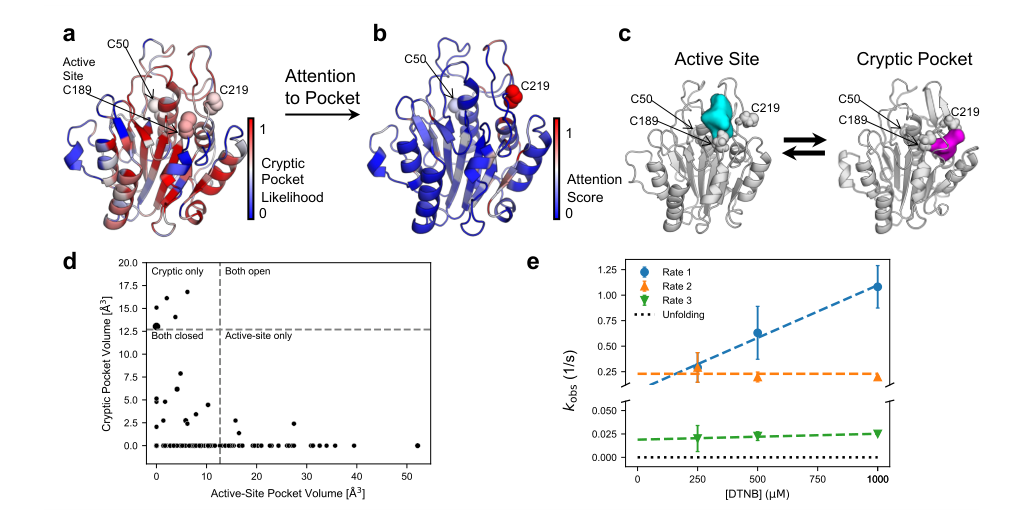
Figure 3. a) δ-secretase 晶体结构(PDB 5LUA,去掉配体 5KN)按预测的隐蔽口袋概率着色,球形为催化半胱氨酸 C189 和两个埋藏半胱氨酸 C50、C219。b) 同一结构按相对活性位点口袋的注意力分数着色。c) C219 旁口袋关闭(左)与打开(右)的代表构象,青色和品红色表面为各自的开放口袋体积。d) MSM 中每个状态的隐蔽口袋体积与活性位点体积散点图,点大小正比于该状态的平衡布居。e) 三个半胱氨酸在不同 DTNB 浓度下实测的硫醇标记速率,黑色点线为解折叠态的预期标记速率。
先看怎么挑的靶点——这本身就是方法的一部分
作者把 PDB 里所有人源蛋白过了一遍,筛选条件逐层收紧:
条件 1:残基数少于 300。
条件 2:含 1 到 3 个埋藏的未配对半胱氨酸。这一条是为实验服务的——有埋藏半胱氨酸,就能用硫醇标记实验检验化学试剂能不能够到它,够得到就说明蛋白动态过程中确实打开了通往该残基的口袋。这一步过完剩下约 10,000 个候选。
条件 3:聚焦与阿尔茨海默病相关的蛋白,因为该疾病未被满足的医疗需求极大。
条件 4:埋藏半胱氨酸相对已知功能位点有高注意力分数,提示存在变构耦合。
条件 5:蛋白能商业购买,便于快速实验。
δ-secretase(又名 legumain)全部满足。它是一种溶酶体蛋白酶,负责切割淀粉样前体蛋白(APP)产生在阿尔茨海默病病理中声名显赫的 Aβ 肽。
Panel a:两个埋藏半胱氨酸旁边都有口袋
用的结构是 PDB 5LUA(去掉配体 5KN),按预测概率着色,三个半胱氨酸以球形标出。蛋白里一共三个半胱氨酸:C189 是催化半胱氨酸,在晶体结构中部分表面暴露;C219 和 C50 都是埋藏的。模型给出的概率是 C219 为 0.59,C50 为 0.57,两者都被判为有相当概率属于隐蔽口袋。逻辑很干净:它们在静态结构里是埋着的,如果水溶性化学试剂能标记到它们,就意味着蛋白必须动态地打开一条通道。
Panel b:C219 与活性位点耦合强
这一栏改按相对活性位点口袋的注意力分数着色,C219 拿到明显的高分。于是在两个候选口袋之间,作者优先研究 C219 旁边那个。这正是 AE-PocketMiner 相对普通口袋预测工具的实用价值所在:同一个蛋白上有多个候选口袋时,它能给出一个基于耦合强度的排序依据,而不是只按口袋概率高低盲排。
Panel c:模拟里口袋真的开了
用 FAST 跑了 5 轮 × 10 条并行轨迹 × 每条 40 ns。左图是 C219 旁口袋关闭的代表构象,右图是打开的构象,青色和品红色表面分别画出两种状态下的开放口袋体积。定量结果是:C219 旁隐蔽口袋的开放概率约 0.55,C189 所在活性位点的开放概率约 0.57——两个数字都与 AE-PocketMiner 给出的残基概率(0.59、0.57)相当接近。
但有一处对不上:模拟中 C50 始终保持埋藏,与模型预测不符。这三种可能性当时无法区分——口袋不存在、口袋开放太慢导致有限模拟没采到、或者模型在这里报了假阳性。Panel e 的实验正是来回答这个。
Panel d:两个口袋此消彼长
横轴是活性位点体积,纵轴是 C219 旁隐蔽口袋体积,每个点对应马尔可夫状态模型中的一个构象状态,点的大小正比于该状态的平衡布居。作者取 12.69 ų(抑制剂结合结构 5LUA 中活性位点的体积)作为示意性的开放阈值,把图划成四个象限。
散点明显集中在”隐蔽口袋开、活性位点关”和”活性位点开、隐蔽口袋关”两个区域,两个口袋的体积呈负相关,很少同时充分开放。这与注意力分数提示的变构耦合一致。推论也很直接:如果一个小分子能稳定 C219 口袋的开放态,有可能把活性位点推向关闭,从而抑制酶活。不过这一条仍属计算证据,单凭体积反相关不能证明严格的因果关系。
Panel e:硫醇标记实验给出判决
实验用的是购自 Biomatik 的人源 legumain(残基 18–323)。方法是 DTNB(5,5′-二硫代双(2-硝基苯甲酸))标记:10 μM 蛋白与不同浓度 DTNB 在 25 °C 混合,用停流分光光度计记录 412 nm 处吸光度(对应释放出的 TNB²⁻),直到信号平台(约 300 s)。原始动力学曲线扣除缓冲液对照后做全局多指数拟合,指数个数与构建体中的半胱氨酸数目一致,从而解出每个位点的观测速率常数。数据至少三次独立实验,用 Linderstrøm-Lang 模型分析速率对 DTNB 浓度的依赖关系,再根据体系遵循 EX1 还是 EX2 机制算出口袋开放的平衡常数。
图中横轴是 DTNB 浓度,纵轴是观测速率,三种颜色对应拟合出的三个动力学过程,彩色虚线是线性拟合,黑色点线是假设必须先全局解折叠才能标记时的预期速率。
三条结论
1)观察到三个标记速率,说明三个半胱氨酸都能被试剂够到。如果预测的两个口袋有任何一个不存在,相应的半胱氨酸就不该被标记,观察到的速率数就会少于三个。这同时确认了 C219 旁和 C50 旁都存在隐蔽口袋——包括模拟没采样到的 C50。
2)三个速率都远快于解折叠态的预期速率,说明标记来自天然态的局部构象涨落,蛋白不需要先整个摊开。
3)三个速率都落在课题组以往在其他隐蔽口袋中观察到的范围内。如果有哪个半胱氨酸其实是常态暴露在表面的,它的标记速率会显著快于观测到的任何一个速率。
速率与残基的对应关系是推断出来的,作者在文中写得很谨慎:最快的那个推测对应部分暴露的 C189;结合模拟结果,第二快的推测对应 C219 旁的隐蔽口袋,最慢的对应 C50。这个归属合理,但不是位点特异性的直接证明,要坐实还需要质谱、单点突变或位点特异探针。
蛋白质组学文献的旁证
硫醇标记成功之后,作者回头做了更深入的文献调研,在一篇用 legumain 这个别名发表的蛋白质组学研究里找到了两条独立证据:其一,C219 可以被碘乙酰胺-炔(IA)修饰——该文没有讨论标记的结构机制,但既然 C219 在现有晶体结构中是埋藏的,能被共价修饰本身就佐证了旁边存在口袋;其二,C219 的氧化以及 C219S、C219A 突变都会抑制前肽的自切割,而这个自切割是 δ-secretase 激活的必经步骤。第二条直接支持了 C219 口袋与活性位点之间存在功能耦合。
这一案例的分量在于它走通了完整链条:从约 10,000 个候选蛋白里筛靶 → 预测新口袋 → 用注意力在同一蛋白的多个口袋中排序 → 模拟观察到口袋开合与反相关 → 硫醇标记实验确认局部开放 → 既有文献佐证功能耦合。模型不只是在复现已知口袋。
Figure 4 · VP35:实验确认模型设计的变构突变
这张图想回答:注意力分数挑出的变构残基,突变后能否真的改变口袋开合平衡?
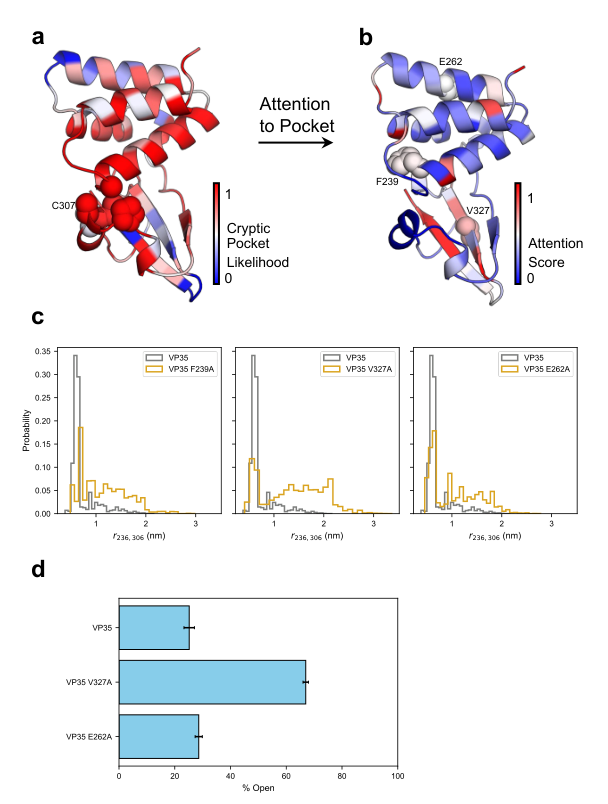
Figure 4. a) VP35 晶体结构(PDB 3FKE)按预测的隐蔽口袋概率着色,球形为定义该口袋的 G236、P304、A306、C307、S310。b) 同一结构按相对该口袋的注意力分数着色,F239、V327、E262 以球形标出。c) 三个突变体与野生型的 G236–A306 距离分布,距离越大代表口袋越开。d) 硫醇标记实验测得的野生型、V327A、E262A 开放态布居(n=3),误差棒为重复间标准差。
VP35 来自扎伊尔埃博拉病毒,本案例研究的是它的干扰素抑制结构域。课题组此前已经用模拟加生物物理实验在其中发现了一个隐蔽口袋,这个口袋变构控制 VP35 与双链 RNA(dsRNA)的关键相互作用。口袋的形成机制是 helix 5(残基 305–309)从四螺旋束上移开,暴露出 G236、P304、A306、C307、S310;附近 T237、A238、L311、F328、L338 也会部分暴露。
开合状态有两把尺子:模拟里看 G236–A306 距离,实验里看 C307 的硫醇标记。课题组还已经找到过能改变开合平衡的突变:F239A 增加开放,A291P 减少开放。这些既有知识让 VP35 成为检验模型的理想体系——既能看它能不能复现已知,又能用它测试全新预测。
防数据泄漏的处理
训练本案例所用模型时,作者把全部 VP35 模拟数据从原训练集中删除,确保模型没有因为见过这个蛋白而占便宜。这一步做得很干净。
Panel a:复现已知口袋,对比上一代差距明显
结构用 PDB 3FKE,按预测概率着色,五个定义口袋的残基以球形标出。结果是 五个残基全部被给出大于 0.5 的概率;相比之下,原 PocketMiner 只高置信地预测出其中一个。五比一的差距,与作者关于”AE-PocketMiner 更能捕捉远端残基的变构效应”的说法是一致的。
Panel b:注意力既复原已知、又提名新位点
按相对该口袋的注意力分数着色后,三个残基被标出:
F239 —— 阳性对照
模型给它较高的注意力分数,而 F239A 增加口袋开放概率是已知事实。反过来,对已知会减少开放的 A291,模型给的是低分。一正一反两个已知位点都对上了,说明注意力确实恢复出了部分真实的变构信息。
V327 —— 新预测之一
注意力分数高。它离口袋不远,位于口袋背面的 β 链上,但侧链朝向口袋外侧。单看静态结构,很难想到它能直接控制口袋。
E262 —— 新预测之二
注意力分数略低于 V327,但作者特意选它:它离隐蔽口袋非常远,侧链朝向溶剂。除了模型的预测之外,没有任何理由会让人挑中这个位置。
Panel c:模拟先行
三个子图分别比较 F239A、V327A、E262A 与野生型的 G236–A306 距离分布。VP35 体系较小,模拟跑得更充分:10 轮 × 10 条并行轨迹 × 每条 50 ns。结果是三个突变体都倾向于增加口袋开放,其中 V327A 的效果在分布上最明显,E262A 也呈同方向偏移。
Panel d:实验数字
VP35 及其突变体在大肠杆菌 BL21(DE3) Gold 中表达:37 °C 培养至 OD600 约 0.6–0.8,1 mM IPTG 诱导,18 °C 表达 24 小时;超声裂解后经 Ni-NTA 亲和层析、TEV 蛋白酶切标签、阳离子交换层析和 Superdex 75 分子筛纯化,最终缓冲液为 10 mM HEPES (pH 7.0)、150 mM NaCl、1 mM MgCl₂、2 mM TCEP,SDS-PAGE 与完整质量分析确认样品质量。之后用 C307 的 DTNB 标记动力学反推开放态布居——口袋关闭时 C307 够不到,打开时才可被标记。
| 蛋白 | 开放态布居 | 与野生型相比 |
|---|---|---|
| VP35 野生型 | 25.2 ± 1.3% | 基准 |
| V327A | 67.0 ± 1.0% | 开放比例提高到约 2.7 倍,效应很强 |
| E262A | 28.6 ± 1.9% | 提高幅度较小但可测量,方向与模拟一致 |
n=3,误差为重复实验间标准差。数据来源:论文正文与 Figure 4d。
排除”突变只是让蛋白更容易散架”这个替代解释
标记变快还有一个无聊的可能:突变破坏了蛋白稳定性,整体更容易解折叠,半胱氨酸自然更好标。作者做了四组对照把这条路堵死——热力学稳定性(图 S8)、整体二级结构(图 S9)、天然条件下的解折叠态布居、半胱氨酸本征标记速率。
图 S10 显示,在整个 DTNB 浓度范围内,观测到的标记速率都显著快于解折叠态的预测速率。因此标记来自天然折叠态下的局部涨落,而不是全局解折叠。
这是全文最直接的一条证据链:模型根据注意力提名残基 → 模拟预测突变效应 → 湿实验测到口袋开放平衡确实被改变。尤其 E262 离口袋很远、朝向溶剂,纯凭结构直觉挑不出来,实验仍测到了方向正确的效应。不过 E262A 的效应(25.2% → 28.6%)远小于 V327A(25.2% → 67.0%),这说明注意力分数高不等于突变效应强。
四、核心贡献总结
发现 1:一个模型同时回答”口袋在哪”和”谁控制它”
把注意力模块接在 GVP 消息传递之后,模型在预测每个残基的隐蔽口袋概率的同时,自然产出一个全残基对的注意力矩阵。过去需要额外做变构分析才能回答的问题,现在是同一次推理的副产品。
发现 2:大规模召回率大幅提升,且架构与数据缺一不可
CryptoBank 上召回率 56.7% → 76.0%(全部标注)、47.2% → 72.6%(高置信)。消融实验表明,单独加注意力或单独扩数据都达不到这个提升。
发现 3:能泛化到训练集几乎没覆盖的蛋白类型
124 个训练蛋白里只有 1 个膜蛋白,且与 CB1 无结构同源性。模型仍然在 CB1 上命中 30 个已知口袋残基中的 29 个,并提名出远端的 R150,模拟确认 R150A 显著促进口袋开放。
发现 4:在一个此前没有已知隐蔽口袋的蛋白上发现了新口袋
δ-secretase 的 C219 旁隐蔽口袋由模型预测、模拟观察到(开放概率约 0.55)、与活性位点体积反相关、硫醇标记实验确认可被试剂够到,还有蛋白质组学文献佐证其与活性位点的功能耦合。
发现 5:注意力能用来设计改变口袋平衡的突变体
VP35 中 V327A 把实验测得的开放态布居从 25.2% 提到 67.0%,E262A 提到 28.6%,并通过稳定性、二级结构等多组对照排除了全局解折叠这一替代解释。
发现 6:秒级推理,适合大规模筛
对单个输入结构运行只需数秒。相比对每个蛋白跑微秒级模拟,这是量级上的差别,意味着可以把 PDB 或 AlphaFold 结构库整体扫一遍再做优先级排序。
五、局限与展望
通讯作者介绍
本文通讯作者为 Gregory R. Bowman,现任宾夕法尼亚大学 Louis Heyman University Professor,本文的署名单位为宾夕法尼亚大学生物化学与生物物理系,同时担任分布式计算平台 Folding@home 的主任。他 2006 年于康奈尔大学获计算机科学学士学位(summa cum laude,辅修生物医学工程),2010 年于斯坦福大学获生物物理学博士学位,博士期间在 Vijay Pande 课题组发展马尔可夫状态模型方法,这套方法后来成为 Folding@home 把海量短轨迹拼成完整动力学图景的核心工具;随后他在斯坦福大学担任 Berry 博士后研究员,又前往加州大学伯克利分校任 Miller Research Fellow。2014 年他在圣路易斯华盛顿大学医学院生物化学与分子生物物理系开设独立实验室,历任助理教授与副教授,2018 年起出任 Folding@home 主任,2022 年把实验室迁至宾夕法尼亚大学并被聘为 Penn Integrates Knowledge(PIK)讲席教授。他的研究把大规模分子动力学模拟、马尔可夫状态模型、机器学习与生物物理实验结合起来,核心目标是理解蛋白如何在不同构象之间涨落、这些涨落如何决定功能与失能,并据此在传统意义上”不可成药”的蛋白上寻找隐蔽口袋与变构位点,应用方向覆盖阿尔茨海默病、病毒感染等重大健康威胁;本文的第一作者 Si Zhang 是其课题组成员,负责模拟数据处理、训练标签生成以及模型训练与评估。
引用
Zhang, S., Mishra, P., Kelly, D., Kumar, R., & Bowman, G. R. (2026). AE-PocketMiner Uses Attention to Simultaneously Predict Cryptic Pockets and Their Allosteric Coupling. bioRxiv. https://doi.org/10.64898/2026.05.21.726899