
De novo design of GPCR exoframe modulators
原文链接:全文
作者:Shizhuo Cheng, Jia Guo, Yun-li Zhou, …, Yan Zhang
Nature,2026 年 3 月
导读
GPCR 是最重要的药物靶点家族,但传统药物几乎都通过结合内部正构位点发挥作用。这篇 Nature 文章提出了一种全新策略:利用 RFDiffusion 和 ProteinMPNN 从头设计约 60–70 个氨基酸的双跨膜螺旋蛋白(GPCR exoframe modulators, GEMs),让它们从细胞膜内侧贴附在 GPCR 的跨膜结构域外表面,像”外骨架”一样稳定受体的特定构象。以多巴胺 D1 受体为模型,作者成功设计并通过冷冻电镜验证了四种功能不同的 GEM——锚定型、偏向性变构调节剂、负变构调节剂和激动性正变构调节剂,计算模型与实验结构的 RMSD 低至 0.9 Å。激活型 GEM 还能挽救多种 D1R 功能缺失突变,包括与婴儿期帕金森病相关的 T37K 突变。
一、研究问题
GPCR(G 蛋白偶联受体)家族包含约 800 个成员,是目前已批准药物中最常见的靶点类别——约 35% 的上市药物以 GPCR 为靶点,覆盖从心血管疾病、代谢综合征到精神疾病和疼痛的广泛治疗领域。传统 GPCR 药物通过结合天然配体(如多巴胺、肾上腺素、5-羟色胺)所在的正构位点来激活或抑制受体。然而,正构位点在同一受体亚家族间往往较为保守,导致亚型选择性不足和脱靶副作用——例如 D1 和 D5 多巴胺受体的正构口袋高度相似,用小分子很难区分两者。变构调节剂虽然可以结合其他口袋,但可用的化学空间有限,且大多数已报道的 GPCR 变构位点位于受体的胞外或胞内表面。更重要的是,当 GPCR 的正构位点或内部激活微开关因突变而失灵时,即使增加激动剂浓度也往往无法挽救受体功能——如果突变破坏了受体从非活化态向活化态构象转换的内部传导网络,传统药物将面临根本性失效。
自然界提供了另一种调控思路:RAMP(受体活性修饰蛋白)、MRAP 和 CD69 等天然单跨膜蛋白可以通过与 GPCR 的跨膜区相互作用来调控受体的运输、配体选择性和信号特性。例如,RAMP 家族通过与降钙素受体类 GPCR 的跨膜区相互作用,决定了受体对 CGRP 还是 amylin 的选择性。作者由此提出:能否人工设计跨膜蛋白,从膜内侧面结合 GPCR,机械性地稳定受体的特定构象?这就是 GEM(GPCR exoframe modulator)的核心设想——一种位于受体外侧的结构框架,通过物理支撑来控制构象平衡,绕开对正构位点的依赖。作者选择多巴胺 D1 受体(D1R)作为模型系统:D1R 在前额叶认知功能、运动控制和奖赏通路中扮演关键角色,其功能缺失突变与帕金森病和肌张力障碍等神经系统疾病直接相关,而目前临床上缺乏高选择性的 D1R 调节药物,使其成为检验新型调控策略的理想目标受体系统。
二、方法核心:设计流程
(a)作者首先通过计算探测寻找 D1R 跨膜表面的可设计位点。利用 RFDiffusion 在 D1R 活化态结构周围生成 300 条单跨膜 α 螺旋,再用 ProteinMPNN 设计序列并由 AlphaFold2-Multimer 预测复合物结构,共分析 1,500 个预测构象。对接结果按界面残基的接触频率映射到受体表面,清晰显示出三个高密度可结合凹槽:TM1/2/4 区域、TM3/4/5 区域和 TM5/6/7 区域。其中 TM5/6/7 尤为关键,因为 A 类 GPCR 激活的标志性构象变化——TM6 胞质端外移约 14 Å——正发生在这一区域。(b)设计目标是让不同 GEM 分别结合这三个区域,实现不同的功能输出。(c)核心设计管线包括 RFDiffusion 生成初始骨架、MPNN-AF2 迭代重折叠优化序列、以及基于局部置信度(pLDDT)、自洽性 RMSD 和信息熵的多轮筛选。每轮对候选骨架设计 8 条序列,每条预测 5 个结构,最终保留的设计要求 GEM 区域 pLDDT 超过 90、自洽 RMSD 小于约 1.5 Å。经过多轮筛选后,每种类型保留数十个候选序列进行实验测试。
(d)设计中最巧妙的部分是三种”结构提示”(structural prompting)策略,借鉴了语言模型提示工程的思想,用结构信息引导扩散模型在特定区域和特定构象下生成骨架。位点定向插入:将 GEM 序列通过连接肽临时插入 D1R 特定胞内环(如 ICL2 或 ICL3)的位置,从拓扑上限制其只能靠近目标区域,扩散模型在生成骨架时被约束在受体的特定表面附近。位点阻断预占据:在竞争位点先放置已有的高亲和设计作为”占位符”,迫使新 GEM 寻找其他目标表面,避免多个 GEM 挤在同一个凹槽上。构象诱导:在设计激活型 GEM 时将 Gαs 蛋白加入 RFDiffusion 的输入结构,使 D1R 保持 TM6 向外移位的活化构象,让设计出的 GEM 适配这一打开状态。反之,移除 Gαs 则让受体回到非活化态,用于设计锁定非活化构象的抑制型 GEM。这些策略使得即使在同一受体上,也能针对不同跨膜区和不同构象态分别设计出功能迥异的模块。
三、看图说话
Figure 1 · 找到可设计凹槽并设计 GEM
这张图想回答:怎样在 D1R 跨膜表面找到可设计的凹槽,并针对性地设计 GEM?
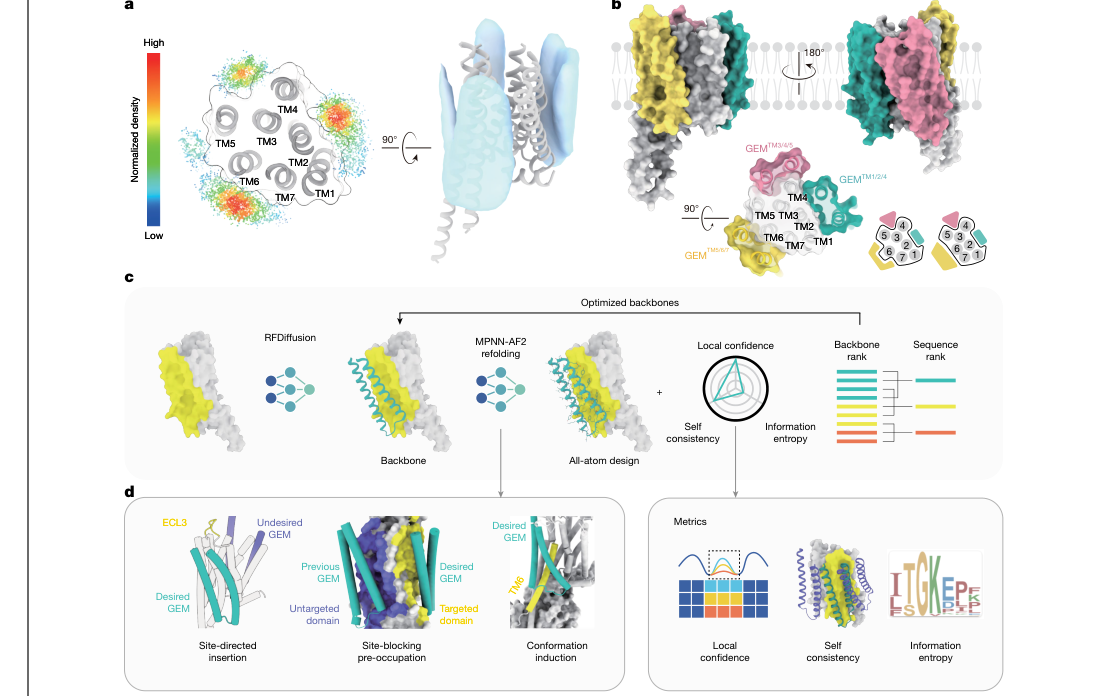
Figure 1. GEM 的从头设计。(a) 用单跨膜螺旋探测 GPCR 跨膜表面的可结合位点。(b) 三个目标凹槽。(c) RFDiffusion 生成 + MPNN-AF2 迭代优化 + 多轮筛选的管线。(d) 三种结构提示策略。
- Panel a/b:用 RFDiffusion 在 D1R 周围生成 300 条单跨膜螺旋、ProteinMPNN 设计序列、AF2-Multimer 预测,共分析 1,500 个构象,按界面接触频率映射到受体表面,得到三个高密度凹槽:TM1/2/4、TM3/4/5、TM5/6/7(后者最关键,因为 A 类 GPCR 激活时 TM6 胞质端外移约 14 Å 就发生在这里)。
- Panel c/d:管线要求 GEM 区域 pLDDT > 90、自洽 RMSD < 1.5 Å。最巧妙的是三种结构提示:位点定向插入(用连接肽把 GEM 临时插到特定胞内环,限制其靠近目标区)、位点阻断预占据(先放占位符逼新 GEM 另找表面)、构象诱导(设计激活型时把 Gαs 加进输入、让受体保持 TM6 外移的活化态)。
Figure 2 · 设计结果的计算评估
这张图想回答:多轮迭代设计后,四种 GEM 的序列和结构置信度收敛得怎样?
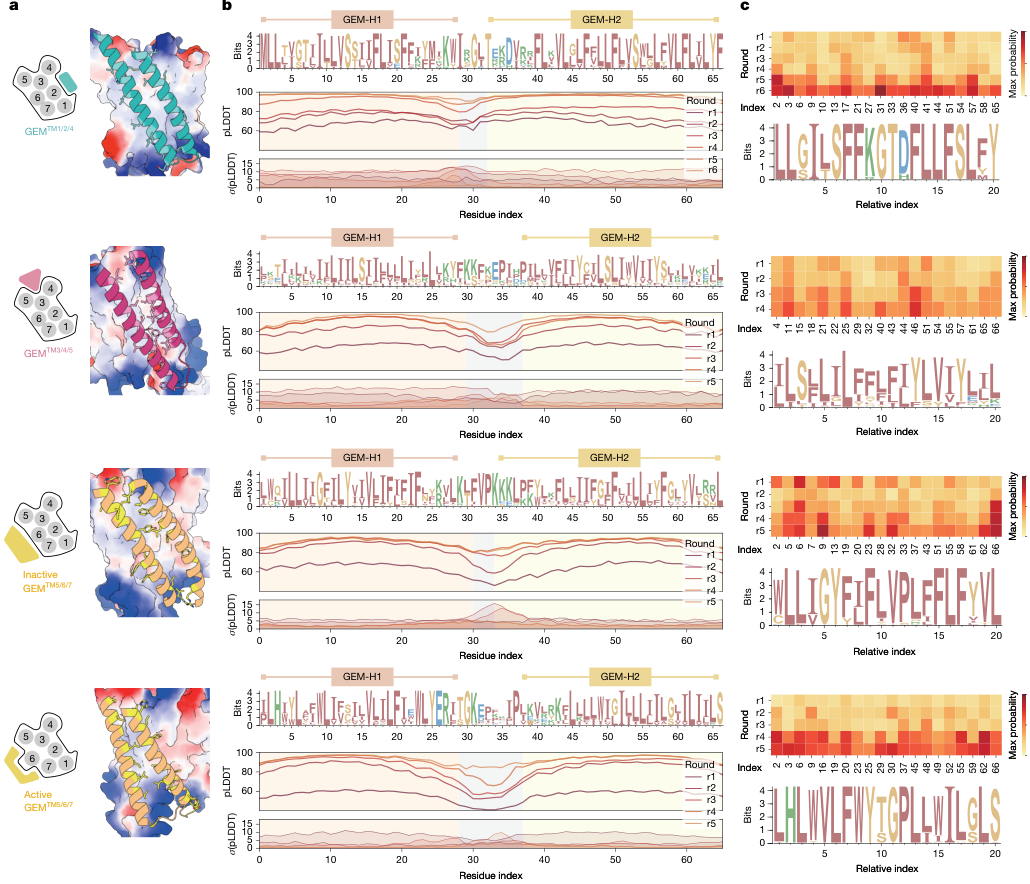
Figure 2. 设计结果的计算评估。(a) 四种 GEM 的结合构象与靶点表面。(b) 各设计轮次的序列 logo、pLDDT 及其标准差。(c) 各轮最大概率热图与保守位点 logo。
四行分别对应锚定型(TM1/2/4)、偏向型(TM3/4/5)、抑制型和激活型(都在 TM5/6/7)。Panel b:随设计轮次 r1→r6,pLDDT 曲线整体抬高、两段跨膜螺旋(GEM-H1/H2)区域置信度最高,中间连接环置信度略低且波动大;序列 logo 显示螺旋区富含 I、V、L、F 等疏水残基,以在脂双层里稳定折叠。Panel c 的最大概率热图显示某些位点随轮次收敛到高度保守。
Figure 3 · 四种 GEM 的功能与结构
这张图想回答:四种 GEM 结合 D1R 不同跨膜区后,产生了怎样截然不同的功能效应?
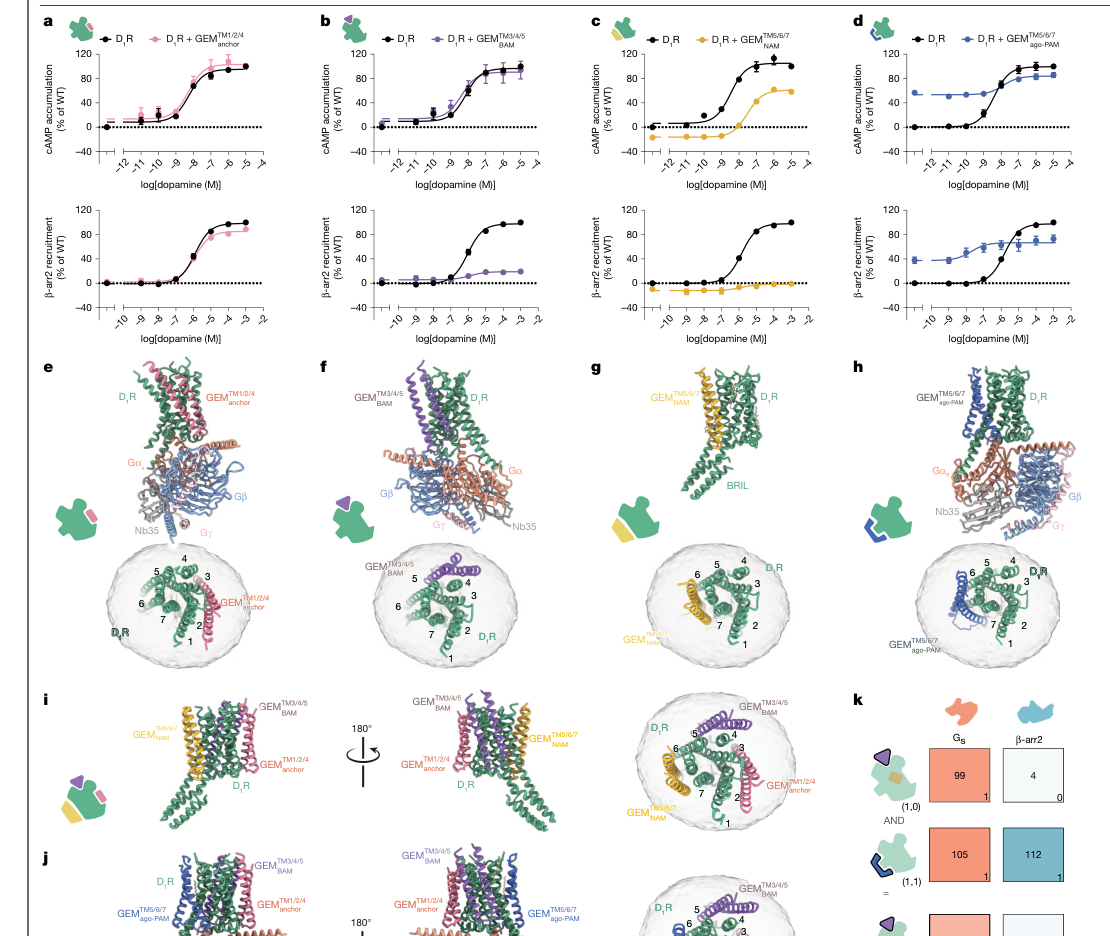
Figure 3. 从头设计 GEM 与 D1R 复合物的高分辨率结构。(a–d) 锚定型、偏向型、抑制型、激活型 GEM 的结合与功能效应。(e–h) 冷冻电镜结构(2.6–2.9 Å)。(i–k) 多 GEM 同时结合与模块化组合。
GEM 约 60–70 个氨基酸、两根疏水跨膜螺旋。四种功能迥异:锚定型(a)几乎不影响信号,可当中性载体;偏向型(b)Gs 信号仅轻降、β-arrestin 招募压到约 20%,把信号导向 G 蛋白;抑制型(c)像结构夹具挡住 TM6 外移,使 EC50 降约 100 倍;激活型(d)预组织的「夹钳」适配外移的 TM6,既自身激动又正变构增强。
- Panel e–k:冷冻电镜证实四种结合模式,三个 GEM 能同时结合同一个 D1R(占据三个不重叠凹槽)。模块化组合像逻辑门:激活型+偏向型共作用时 Gs 保留约 70%、β-arrestin 压到约 3%,实现 G 蛋白偏向性激活。
Figure 4 · 设计精度与调控的结构基础
这张图想回答:计算设计和实验结构吻合到什么程度?抑制和激活的机制在结构上是什么?
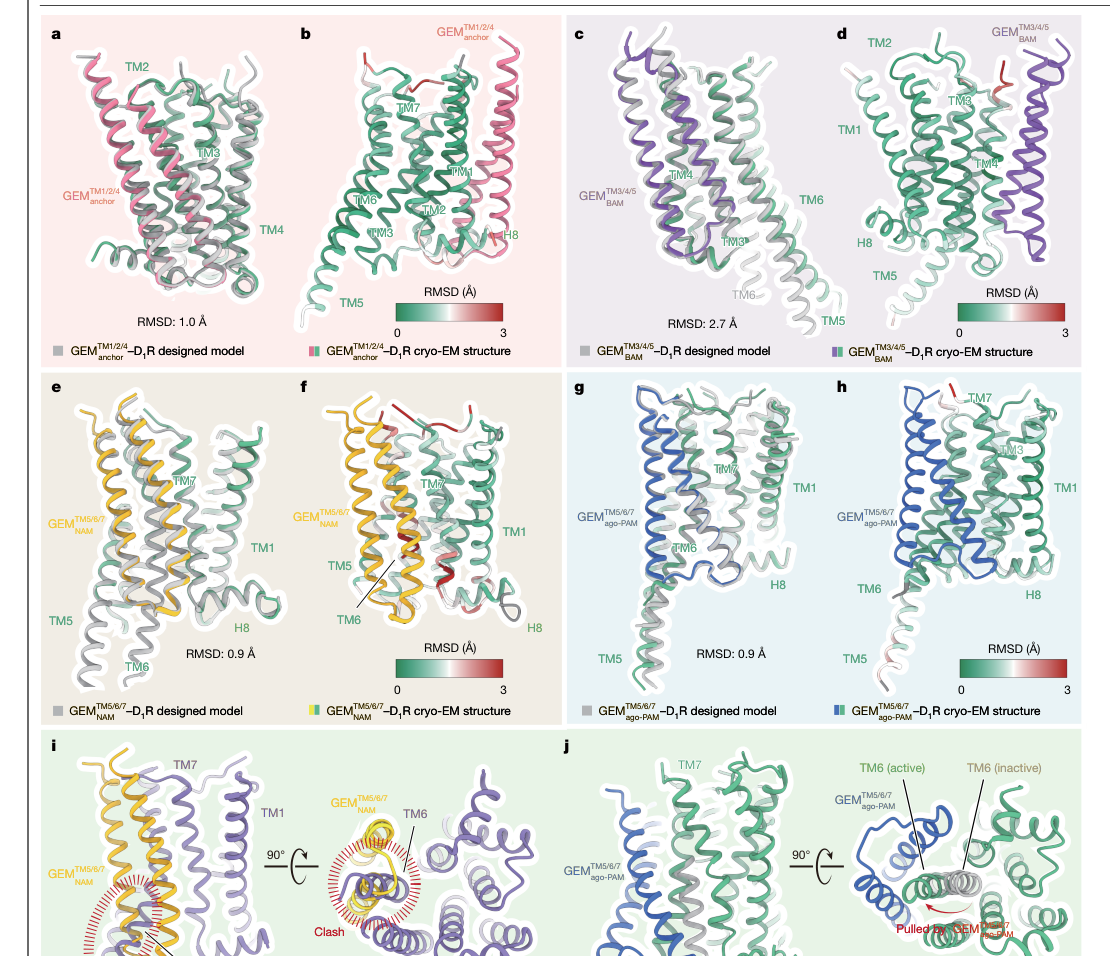
Figure 4. GEM 调控 GPCR 的结构评估与分子基础。(a,c,e,g) AF2 预测与实验结构叠合。(b,d,f,h) 按残基着色的 RMSD。(i) 抑制型挡住 TM6 外移。(j) 激活型稳定 TM6 外移的活化态。
- Panel a–h:AF2 预测与 2.6–2.9 Å 冷冻电镜结构叠合,锚定型 RMSD 1.0 Å、抑制型 0.9 Å、激活型 0.9 Å,偏向型 2.7 Å(偏大是因为结合后 TM4 发生诱导契合、AF2 未完全预测到)。按残基着色显示跨膜核心偏差 < 0.5 Å,主要偏差在柔性环区。
- Panel i/j 点出两种相反机制:抑制型的刚性双螺旋与活化态 TM6 位置严重冲突(Clash),物理挡住它外移,相当于构象锁;激活型的夹钳正好适配外移后的 TM6,从外侧稳住活化构象。用物理支撑代替化学抑制/激活,是 GEM 的核心思想。
四、核心贡献总结
(a,c,e,g)四种 GEM 的 AF2 预测结构与冷冻电镜实验结构(分辨率 2.6–2.9 Å)的叠合显示了很高的设计精度:锚定型 RMSD 1.0 Å,抑制型 0.9 Å,激活型 0.9 Å,偏向型 2.7 Å(偏差较大主要因为 GEM_BAM 结合位点附近的 TM4 在结合后发生了受体局部重排,AF2 未完全预测到这一诱导契合效应)。(b,d,f,h)RMSD 按残基着色的热图显示,跨膜核心区域(膜中心附近)偏差极小(通常 <0.5 Å),主要偏差集中在靠近胞外和胞内水相边缘的环区和侧链,这些区域本身具有较高的构象柔性。(i)抑制型 GEM 的作用机制:形成刚性双螺旋结构贴附在 TM5/6/7 外侧,与活化态 D1R 的 TM6 产生严重的空间冲突(Clash 标注区域),有效阻止 TM6 向外移动。本质上,GEM_NAM 充当了一个构象锁——用物理障碍代替化学抑制。(j)激活型 GEM 的作用机制则恰好相反:其预组织的”夹钳”结构精确适配向外位移后的 TM6,从外侧稳定活化构象,将构象平衡推向 G 蛋白可进入的开放状态。
五、局限与展望
最具临床潜力的发现是激活型 GEM 对 D1R 功能缺失突变的挽救能力。作者测试了两大类突变:配体结合缺陷和受体激活微开关缺陷。对配体结合缺陷突变 D103A(单胺类配体识别的关键残基 D103^3.32),GEM 将 Gs 信号恢复到野生型的约 75%。值得注意的是,GEM 无法恢复该突变体对多巴胺的剂量依赖性响应,而是主要通过提高受体的基础活性进行补偿——它绕过了已损坏的配体结合步骤,直接从结构层面推动受体活化。对多个激活微开关突变(L66F、D70A、F281A/R、N327A,这些突变破坏 GPCR 内部的构象转换网络),GEM 恢复约 45%–75% 的 Gs 信号,并使多个突变体重新产生可检测的多巴胺剂量依赖性响应。特别值得关注的是临床相关突变 T37K(T37^1.46K)——该突变与婴儿期帕金森病-肌张力障碍相关,对现有 D1R 靶向治疗反应不佳,而 GEM 将其 Gs 信号恢复到约 50%。这些结果展示了从跨膜表面进行构象补偿的治疗潜力:对于正构口袋损坏或内部微开关失灵的受体,GEM 可以从另一个位置稳定受体活化态,相当于为受体增加”外部机械支撑”。
局限性方面:GEM 是跨膜蛋白,递送到目标细胞、正确插入细胞膜、控制膜拓扑方向、调节表达量和组织特异性等问题尚未解决——这与基因治疗面临的挑战类似,可能需要依赖 AAV、mRNA-LNP 或工程化细胞移植等载体平台。功能验证主要在 HEK293T 过表达体系和去垢剂纯化体系中完成,缺少原代神经元培养、动物模型和长期安全性数据。受体选择性和膜蛋白脱靶效应有待系统评估:膜中存在大量其他跨膜蛋白,GEM 是否会与非靶标受体发生非特异性结合需要进一步验证。冷冻电镜中 GEM 以融合构建体形式呈现,通过刚性连接肽强制拉近,局部有效浓度高于自由表达,因此结构结果证明了结合模式,但亲和力和效价可能与天然膜环境条件有差异。此外,该方法目前只在 D1R 上完成了完整验证——不同 GPCR 的跨膜表面、脂质环境和构象动力学差异很大,推广至其他受体、离子通道或转运体仍是未来工作。尽管如此,GEM 展示的”模块化构象工程”概念——通过组合不同功能模块实现可编程的信号输出——为 GPCR 药理学开辟了一个全新的设计维度,将蛋白质设计工具带入了膜蛋白药理学的核心地带。
通讯作者介绍
张岩(Yan Zhang)为本文通讯作者之一,署名单位为浙江大学医学院(邵逸夫医院病理科、药理学系、脑科学与脑机融合前沿科学中心与良渚实验室),长期从事 GPCR 结构生物学和药物设计研究,先后在 Nature、Science、Cell 等期刊发表多项 GPCR 冷冻电镜结构解析和信号转导机制方面的工作,团队在 GPCR 变构调控与功能选择性信号机制方面积累了丰富经验。张敏(Min Zhang)为另一位通讯作者,署名单位为浙江大学计算机科学与技术学院及浙江大学上海高等研究院,研究方向为计算蛋白质设计和深度学习驱动的膜蛋白工程。共同作者甄学初(Xuechu Zhen)来自苏州大学药学院江苏省神经精神疾病重点实验室与药理学系,研究方向为神经药理学,论文未将其标为通讯作者。本文有五位共同第一作者:Shizhuo Cheng、Jia Guo、Yun-li Zhou、Xumei Luo 和 Gufang Zhang,共同完成了计算设计、细胞功能验证和冷冻电镜结构解析等核心工作。
引用
Cheng, S., Guo, J., Zhou, Y. l., Luo, X., Zhang, G., Zhang, Y. z., … & Zhang, Y. (2026). De novo design of GPCR exoframe modulators. Nature, 651(8104), 242-250. https://doi.org/10.1038/s41586-025-09957-1