
Subsets of Slow Dynamic Modes Reveal Global Information Sources as Allosteric Sites
原文链接:全文
作者:Bengi Altintel, Burcin Acar, Burak Erman, Turkan Haliloglu
Journal of Molecular Biology,2022 年 9 月 15 日
变构调控是蛋白质功能的核心机制之一:一个位点受到扰动(如配体结合、点突变或翻译后修饰)后,可以影响空间上远距离的另一个功能位点。传统分析通常将蛋白质的慢速集体运动作为整体来研究,但这种平均化处理可能掩盖次级功能位点的信号——最慢、最强的运动模态会遮挡其他模态中承载的变构信息。
Turkan Haliloglu 团队提出了一种基于 高斯网络模型(GNM)和转移熵(Transfer Entropy) 的新方法:将蛋白质的慢速动态拆分成不同的模态子集,在每个子集中计算残基间有方向的信息流,寻找那些能够向大量其他残基集体、定向传递动态信息的残基——作者称之为”全局信息源”(global information sources)。
在 23 个蛋白质上的系统验证表明,这些全局信息源与已知的活性位点和变构位点高度重合,46 项功能位点预测中 37 项达到统计显著(80.4%)。更重要的是,不同慢模态子集揭示了不同层次的变构通路——同一个蛋白质内部存在多套并行的信息传递网络。
一、研究问题
变构效应的传播方式并不总是一条清晰的结构路径。蛋白质的运动可以分解为多个正常模态:最慢的模态通常对应大尺度集体运动,但不同慢模态可能分别服务于不同的功能过程——某些模态与活性位点有关,另一些模态可能专门承载变构位点到活性位点的通信。
此前的动态信息流分析(如基于互信息或转移熵的方法)通常将所有慢模态合在一起计算,得到一个平均化的残基间通信网络。这种做法的问题在于:最慢、最强的模态支配了整体结果,导致某些较弱但有功能意义的信息流模式被掩盖。作者将这种现象称为 mode pollution——无关或过强的模态叠加对功能信息模式的污染和遮蔽。
本文提出的核心问题是:如果把蛋白质的慢速动态”分层查看”——对不同的慢模态子集分别计算残基间的定向信息流——不同层次中是否存在不同的功能信息源?这些信息源是否对应活性位点、变构位点或其他调控位点?它们之间的信息流方向如何?是否存在传统分析中被遮盖的变构通信层?
已有一些工作将转移熵应用于蛋白质动态分析(如 Leitner 等人基于 MD 模拟的能量流分析,以及 Hacisuleyman 和 Erman 此前在 GNM 框架中引入转移熵),但它们都在全部慢模态上进行计算。本文的关键创新在于对慢模态做子集分析——通过系统地拆分和组合不同的慢模态,消除 mode pollution,逐层揭示隐藏在不同动力学层中的功能信息源。这个思路的物理直觉是:蛋白质拓扑在不同频率上支持不同类型的集体运动,每种运动可能服务于不同的功能需求。
二、方法核心:GNM + 转移熵 + 慢模态子集拆分
高斯网络模型(GNM)
将蛋白质简化为 Cα 原子组成的弹性网络——距离小于 10 Å 的残基之间建立弹性连接,通过 Kirchhoff 连接矩阵的特征值分解得到正常模态。小特征值对应慢速、全局性运动。GNM 是解析模型,无需进行耗时的长时间分子动力学模拟,可以高效处理上千甚至数千残基的大型蛋白质(如 5348 残基的 TRPM2 四聚体和 4670 残基的 DNA-PK)。
带方向的转移熵
普通相关性只能回答”两个残基是否一起运动”,无法区分信息流的方向。转移熵通过引入时间延迟 τ,衡量”知道残基 i 现在怎样运动后,是否能更准确地预测残基 j 的未来运动”。净转移熵 ΔTi→j = Ti→j - Tj→i 为正,则 i 是相对于 j 的信息发送者。GNM 可以解析地计算带时间延迟的残基涨落相关性,直接估算转移熵,无需 MD 轨迹。
TECol 分数——结合信息强度与集体性
对于每个残基 i,统计它向其他残基发送的正净转移熵总量,同时用集体性指标 Col 衡量信息是否广泛分布到许多其他残基(而非只影响少数局部残基)。TECol = Col × ΔTi→rest+。高 TECol 残基同时满足:信息传递强、影响对象多、集体性控制全蛋白——即全局信息源。论文的基本假设是:活性位点和变构位点之所以在功能上重要,部分原因正是它们在特定动态模态中具有这种全局信息传播能力。
慢模态子集搜索:简单搜索依次分析模态 1-Ns、2-Ns、3-Ns 等,逐步去掉最慢模态,观察每层中哪些残基成为信息源。若简单搜索不足,进一步使用 3-5 个模态的组合搜索(如模态 {1,4,8,9}),减少 mode pollution。选择原则是最大化信息传递的集体性 Col——Col 接近 1/N 表示信息均匀散布到所有残基(类似白噪声,无功能意义),接近 1 表示信息高度集中到极少数残基(局部效应),论文选取的中间值则表示信息有效地传递到一组功能相关残基。这种操作类似于把蛋白质的慢速动态分层查看——去掉最慢模态后,原先被掩盖的次级信息流才会显现。
三、看图说话
论文选择了三个具有明确变构机制的蛋白质作为详细案例——ATCase(经典双态变构酶)、Na+/K+-ATPase(跨膜离子泵)和 TRPM2(配体门控离子通道),它们的功能位点和变构调节剂都有可靠的实验标注,可以直接与 TECol 预测对比。
Figure 1 · 基于 GNM 的信息传递示意
这张图想回答:怎样在弹性网络里定义残基之间「有方向」的信息流?
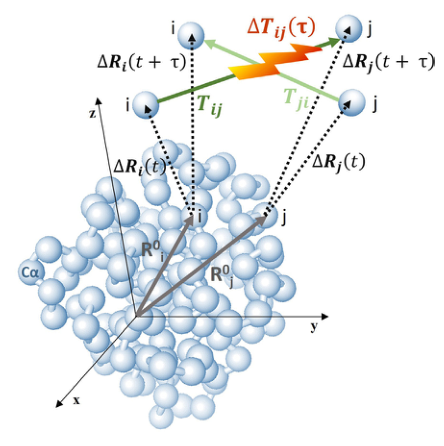
Figure 1. GNM 信息传递示意。球代表残基 Cα,R⁰ 为平衡位置,ΔR 为涨落;经时间延迟 τ 后,残基 i 的运动 ΔR_i(t) 与残基 j 未来运动之间的净转移熵 ΔT_ij(τ) 定义了信息流的方向。
把蛋白简化成 Cα 弹性网络(距离 < 10 Å 连弹簧),对 Kirchhoff 矩阵做特征分解得到正常模态——小特征值对应慢速全局运动。普通相关只能说两个残基「一起动」,转移熵加了时间延迟 τ,能区分「谁先动、谁跟着动」,即信息流方向。
净转移熵 ΔT_i→j > 0 表示 i 是发送者。再乘以集体性 Col 得到 TECol 分数:同时满足信息强、影响面广、控制全蛋白的残基就是「全局信息源」。GNM 是解析模型、不用跑 MD,所以能处理数千残基的大复合物(如 5348 残基的 TRPM2 四聚体)。
Figure 2 · ATCase 中活性位点与变构位点的动态分层
这张图想回答:同一个蛋白质中,活性位点和变构位点是否隐藏在不同的慢模态层中?
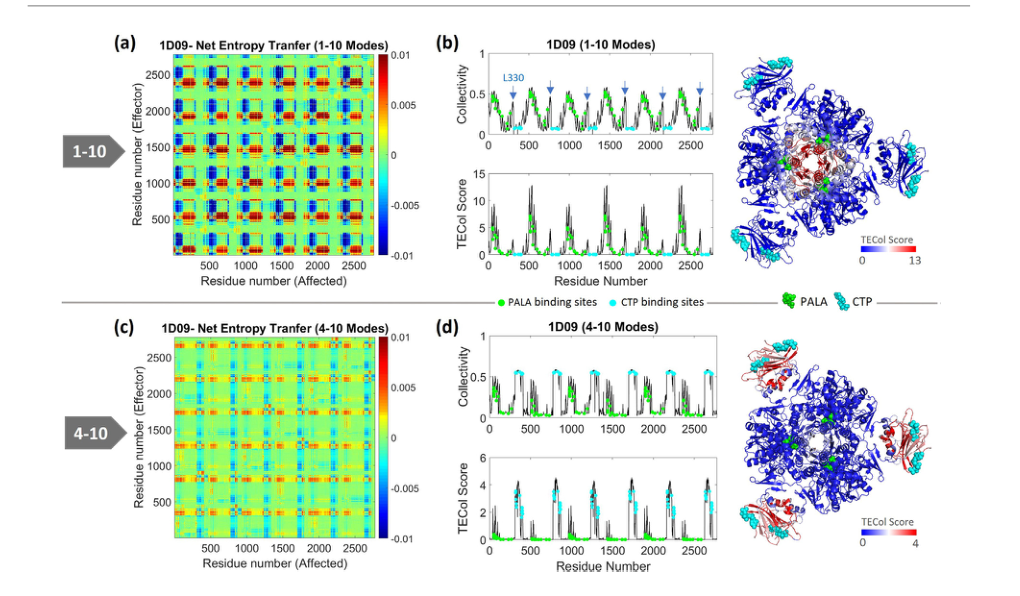
Figure 2. ATCase(PDB: 1D09)中的两层信息流。上排(模态 1-10):高 TECol 残基主要对应 PALA 活性位点(绿色球)。下排(模态 4-10):去掉前三个最慢模态后,高 TECol 残基转而突出 CTP 变构位点(青色球)。同一蛋白质的活性位点和变构位点各自隐藏在不同的慢模态层中。
怎么读这张图
ATCase(天冬氨酸氨甲酰基转移酶)是变构调控研究中的经典范例,由 6 个催化亚基和 6 个调节亚基组成。催化亚基含 PALA 类似物结合的活性位点,调节亚基结合 ATP(正向变构剂)、CTP(负向变构剂)和 UTP。作者分析的是 PALA 结合的 R 态结构(PDB: 1D09),用 10 个最慢模态作为初始分析窗口(文中以 Ns=10 作为截断)。
上排(模态 1-10)是包含最慢模态的完整分析。左侧的净转移熵矩阵显示了残基间定向信息流的全局格局——催化亚基与调节亚基之间的信息交换以成块模式呈现,反映多亚基蛋白中亚基内和亚基间的不同通信通道。右侧 TECol 分布中,高峰明确对应 PALA 活性位点(绿色球)。活性位点残基 A51 能向其他催化亚基传递信息,反映了不同催化位点间的协同性——PALA 的结合不仅影响当前口袋,还与其他催化位点之间的功能协调有关。
下排(模态 4-10)去掉了前三个最慢模态。净转移熵矩阵的模式发生了明显变化——原先不突出的另一层信息流显现出来。TECol 高峰不再指向活性位点,而是转向 ATP/CTP 变构结合区域(青色球,CTP 位置来自 T 态结构 PDB 1RAC 映射到当前分析结构)。变构位点残基 V17 成为强全局信息源,信息主要流向活性位点。
此外,催化亚基 Helix 12 的 C 端区域 A298-N305 也表现出较高 TECol。已有突变实验表明该区域影响三聚体稳定性及催化亚基与调节亚基间的相互作用。这说明 TECol 不只标记配体口袋,还能发现与四级结构稳定和亚基装配有关的功能区域。
图 2 的核心结论:变构位点的信息并非不存在,而是被更强的慢模态掩盖了。只分析全部慢模态的平均结果只看到活性位点,逐步去掉最慢模态后变构位点才显现。这直接回应了本文的中心假说——不同功能位点隐藏在不同的慢模态层中。
Figure 3 · Na⁺/K⁺-ATPase 的信息流分层
这张图想回答:跨膜离子泵里,核苷酸区和离子区之间的长距离通信藏在哪层模态?
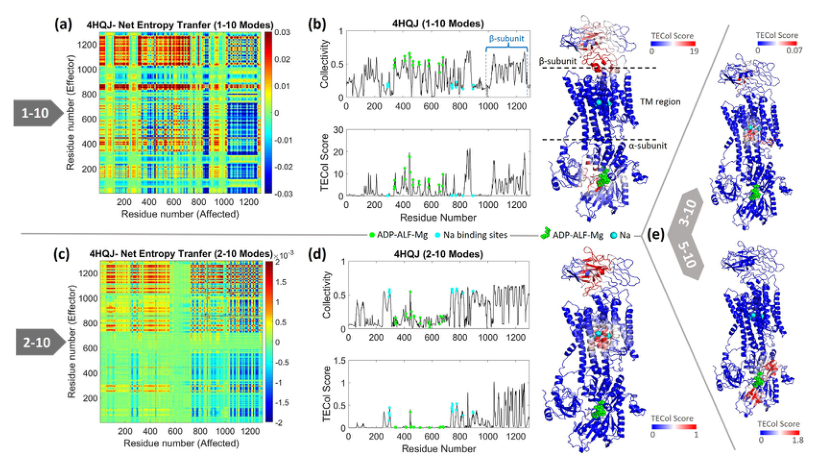
Figure 3. Na⁺/K⁺-ATPase(PDB 4HQJ)。净转移熵图(a, c)与对应的 collectivity、TECol 分数(b, d),以及按 TECol 着色的结构(e)。上排模态 1-10,下排模态 2-10。
这个泵靠 ATP 水解把 3 个 Na⁺ 泵出、2 个 K⁺ 泵入,胞内 ATP 区和跨膜离子区必须长距离通信。1-10 模态里 ADP 位点残基 N476 是信息源、信息流向 Na⁺ 区;2-10 模态里 Na⁺ 位点 D808 反过来成为信息源、信息传回 ADP 区——两个方向由不同模态承担,正对应泵循环 E1↔E2 的双向反馈。尤其 E818 附近集体性极高,而人源该位点突变会破坏 E1→E2 转换、导致儿童交替性偏瘫,为「远距离致病突变」提供了动力学解释。
Figure 4 · TRPM2 离子通道的多层调控
这张图想回答:需要两种配体协同激活的通道,门控螺旋和两个配体位点分别藏在哪些模态里?
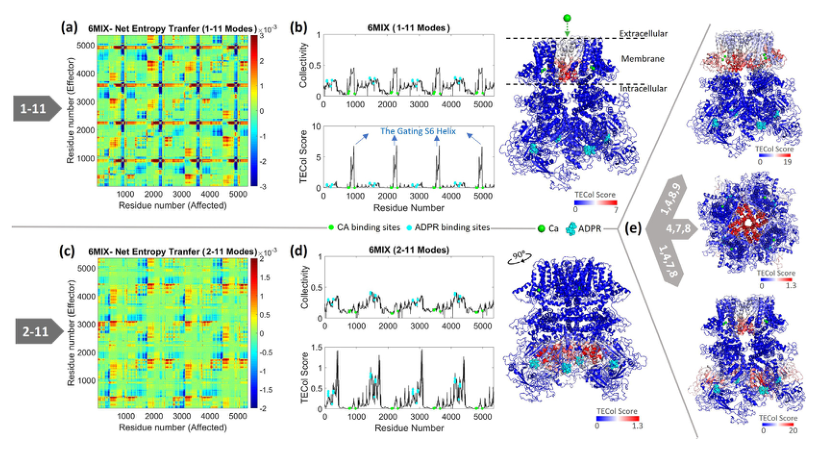
Figure 4. 人 TRPM2 离子通道(PDB 6MIX,5348 残基四聚体)。净转移熵图(a, c)与 collectivity、TECol 分数(b, d)及结构着色(e)。上排模态 1-11,下排模态 2-11。
TRPM2 要 ADPR 和 Ca²⁺ 协同激活、S6 门控螺旋旋转开孔。1-11 模态突出 S6 门控螺旋(执行开门的机械部件),2-11 模态突出 ADPR 结合区,而 Ca²⁺ 位点要靠组合搜索才找得到。这是「为什么必须拆分慢模态」的最佳例证:完整通路 ADPR↔Ca²⁺→S6 门控→开孔,只有在不同模态组合里才逐层显现。四聚体的 C4 对称还让部分慢模态简并,组合搜索正是在简并模态里挑出最能区分功能信号的子集。
Figure 5 · 三个蛋白质中的方向性变构通路
这张图想回答:从一个全局信息源出发,信息具体流向哪里?变构通信是单向的还是双向的?
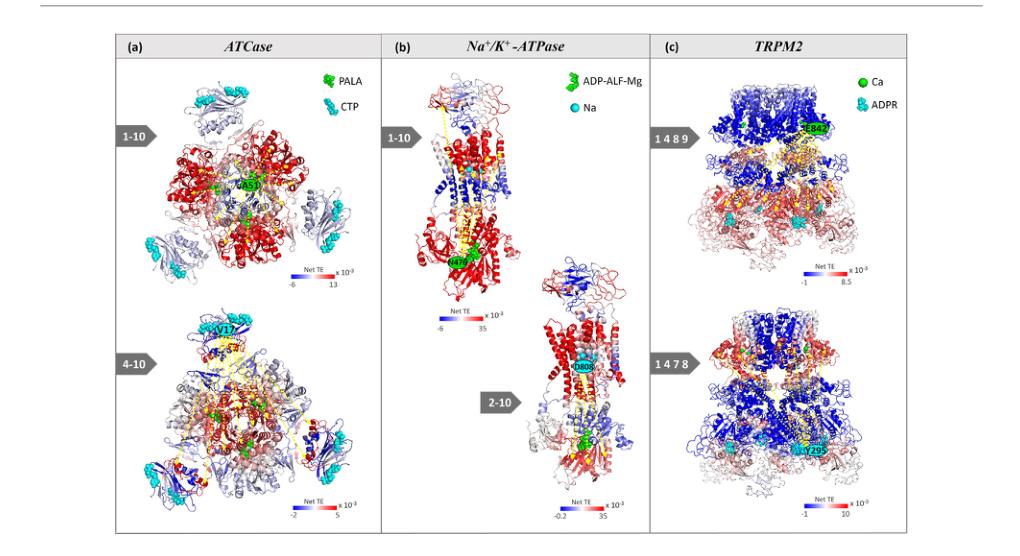
Figure 5. 三个蛋白质中的方向性变构通路。(a) ATCase:活性位点和变构位点分别主导不同层次的信息传递。(b) Na+/K+-ATPase:ADP 位点与 Na+ 位点之间存在双向通信。(c) TRPM2:Ca2+ 结合区和 ADPR 结合区之间存在双向信息交换。红色表示从信息源接收到较强信息,蓝色表示接收较弱,黄色箭头示信息流主方向。
三个案例的核心发现
- Panel a · ATCase:在 1-10 模态中,从活性位点 A51 出发,信息主要流向其他催化亚基上的活性位点,反映催化位点间的协同性。在 4-10 模态中,从变构位点 V17 出发,信息主要传向各亚基的活性位点区域。两个方向由不同慢模态承担——变构位点与活性位点之间形成了分层通信。
- Panel b · Na+/K+-ATPase(PDB: 4HQJ,E1 态):该泵通过 ATP 水解将 3 个 Na+ 向细胞外运输、2 个 K+ 向细胞内运输,胞内 ATP 结合区与跨膜离子位点之间必须存在长距离变构通信。在 1-10 模态中,ADP 结合位点残基 N476 是主要信息源,信息流向 Na+ 结合区和 β 亚基。在 2-10 模态中(去掉最慢模态),Na+ 结合位点残基 D808 变为信息源,信息反向传向 ADP 结合区。两者构成 ADP 区 ↔ Na+ 区的双向变构通信,两个方向分别由不同模态承担,符合泵循环的 E1-E2 构象变换机制——E1 态下 ATP 水解释放能量驱动 Na+ 外排,E2 态下构象改变促进 K+ 内流,核苷酸区域和离子区域之间必须存在持续的双向信息反馈才能协调这一循环。在 2-10 模态中,β 亚基的糖基化位点 N158/N193 和二硫键残基 C159-C175、C213-C276 也表现为信息源,与 Na+ 封闭态稳定和离子运输调节有关。尤其值得注意的是,残基 E818 附近的信息传递集体性极高,而人源蛋白中该位置的突变会破坏 E1 到 E2 的构象转换、影响质子运输并导致儿童交替性偏瘫——这为致病突变产生远距离功能影响提供了动力学解释。
- Panel c · TRPM2(PDB: 6MIX,关闭态,5348 残基四聚体):TRPM2 可被 ADPR 和 Ca2+ 协同激活,S6 门控螺旋旋转使通道开放。简单搜索中 1-11 模态突出 S6 门控螺旋(”执行开放动作的机械部件”),2-11 模态突出 ADPR 结合区(配体调控信息),但 Ca2+ 结合位点需要组合搜索才能找到。模态 {1,4,8,9} 揭示了 Ca2+ 结合区残基 E842 向 ADPR 区传递信息;模态 {1,4,7,8} 揭示了 ADPR 结合区残基 Y295 向 Ca2+ 区传递信息——两者构成 ADPR ↔ Ca2+ 的双向信息交换,与两种配体必须协同激活的实验结论一致。模态 {4,7,8} 还识别了外孔区域,该区域正是 Zn2+ 变构抑制的重要位点。值得注意的是,TRPM2 是四聚体,具有 C4 对称性,这导致部分慢模态是简并的(degenerate)——同一特征值对应多个方向上的等价运动。组合搜索在简并模态中选择最能区分功能信号的子集,这也是为什么不同模态组合会揭示不同调控层的物理原因之一。TRPM2 是”为什么必须拆分慢模态”的最佳例证:完整的信号通路 ADPR ↔ Ca2+ → S6 门控 → 通道开放,只有在特定模态组合中才会逐层显现。
Figure 6 · 23 个蛋白质的总体验证
这张图想回答:全局信息源与功能位点的重合是三个案例的偶然,还是在多种蛋白质中具有普适性?
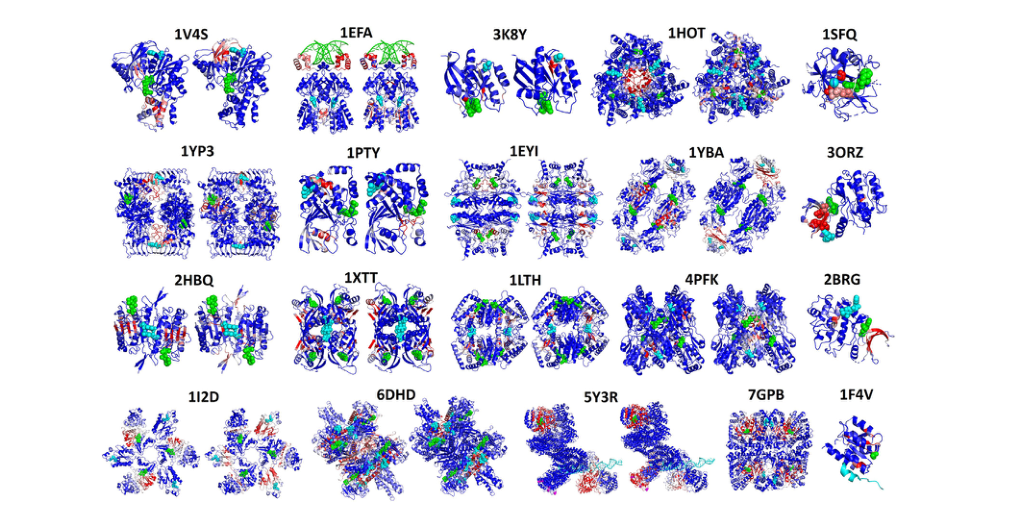
Figure 6. 23 个蛋白质的 TECol 汇总。每个结构按 TECol 着色(红高蓝低),绿色球为活性位点,青色球为变构位点。高 TECol 区域普遍与已知功能位点重合。
数据与解读
不需要逐个辨认所有蛋白质,主要观察一个整体趋势:大量绿色和青色功能位点位于红色或暖色的高 TECol 区域附近。每个结构显示的是能够最大化信息传递集体性的慢模态子集结果。23 个蛋白质(20 个来自已有变构蛋白数据集 + Na+/K+-ATPase、TRPM2 和 DNA-PK 三个额外案例)的 46 项功能位点预测中,37 项达到统计显著(80.4%)。
在 7 Å 判定阈值下:灵敏度最高 100%、特异度最高 92%、精确率最高 64%、准确率最高 85%。对 18 个蛋白质,简单的连续搜索已能揭示功能位点;磷酸果糖激酶和趋化蛋白 CheY 等较困难案例则需组合搜索。
精确率相对不高(最高 64%),部分原因是一些”假阳性”的高 TECol 残基实际上对应尚未标注的真实功能位点——例如在 PDK1 和 CHK1 激酶中,额外的高 TECol 区域与 Kinase Atlas 中的潜在药物结合位点重合;在 DNA-PK 中,一个额外信息源区域与 BRCA1 结合区域重合,从 BRCA1 相关残基 S2056 出发的信息流可以到达激酶催化腔和 DNA 结合区域。灵敏度不总是很高的原因在于:一个结合口袋中有些残基只负责氢键或静电定位等局部作用,属于结合位点但未必具有全局信息传播能力。当距离阈值放宽到 10 Å 时,部分案例的精确率可升至 100%。在方法学上,统计检验对每个慢模态子集中 TECol 前 10% 残基与功能位点的空间重合做置换检验(p < 0.05 为显著),避免了对肉眼判断的依赖。但论文中 46 项检验未做多重比较校正(如 Bonferroni),在同一个蛋白质上对多个模态子集分别做检验会增加假阳性风险。
四、核心贡献总结
本文最有价值的不只是一个新的位点预测分数,而是一种理解变构的视角:蛋白质的变构通信编码在多个慢模态子集中,不同子集分别承载不同方向、不同功能层次的信息流。三个核心案例一致表明,活性位点与变构位点之间的信息传递经常是双向的(ATCase 中活性位点 ↔ CTP 变构位点;Na+/K+-ATPase 中 ADP 区 ↔ Na+ 区;TRPM2 中 ADPR ↔ Ca2+),两个方向分别由不同慢模态承担。这解释了为什么只分析所有慢模态的总和会遗漏重要调控信息——最慢模态经常突出活性位点,去掉它后变构位点才显现。功能位点与全局信息源的重合可能反映了进化优化:蛋白质拓扑使关键位点处于适合影响全局运动的网络位置,用较经济的方式控制整体动态。
对药物设计而言,高 TECol 残基直接标记了具有强且集体性信息输出能力的区域,对应药物靶点需要满足的”受到扰动后能产生全局功能效应”这一要求。不同慢模态子集对应不同变构层,理论上可以实现只干预某一条信息流而保留其他必要功能的精准调控,有助于降低正构抑制剂的副作用。Na+/K+-ATPase 中致病突变与高 TECol 位点的重合还表明,该方法有望解释为什么某些突变会产生与突变位置不成比例的远距离功能影响。GNM 的计算效率(无需 MD 模拟即可处理数千残基的蛋白质)使得这一方法可以作为大规模蛋白质结构筛选的第一步——从 AlphaFold 数据库中批量预测的结构出发,快速标记可能的变构热点,再用更精确的 MD 或实验方法验证优先候选。此外,论文在 TRPM2 和 DNA-PK 上的成功表明,即使对于残基数量超过 4000 的超大型蛋白质复合体,GNM + 转移熵 + 模态子集搜索这一组合仍然可以在合理的计算时间内给出有意义的功能位点预测。
五、局限与展望
GNM 只保留 Cα 节点、统一弹簧常数和谐振涨落,没有显式描述侧链化学差异、氢键和盐桥的特异性、溶剂效应、脂质膜环境和配体的具体相互作用,更适合识别由整体拓扑决定的动态趋势。论文通常只分析某一个静态结构(如 ATCase 的 PALA 结合 R 态、Na+/K+-ATPase 的 E1 态、TRPM2 的关闭态),但同一蛋白在 apo 与配体结合态、活性态与非活性态之间的慢模态和信息源排序可能改变——完整的”动态变构景观”需要比较多个构象状态。
转移熵给出的方向性信息需要谨慎解读:高净转移熵并不意味着两个残基直接接触或沿唯一路径传播——二者之间可能经过许多中间残基,也可能共同受更高层次集体模态的影响。”信息源”是 GNM 模型中的动力学网络角色,同一残基在不同模态组合中可能表现截然不同。
组合搜索虽然能减少 mode pollution,但同时引入了参数选择的灵活性——搜索 3-5 个模态的组合时,可能的子集数量随 Ns 增长迅速,论文中的最大化集体性 Col 只是一种选择准则。实验验证主要基于已知位点的空间重合和文献引用,新预测位点(如 PDK1 激酶上的额外 TECol 高峰)虽然在 Kinase Atlas 等数据库中有间接支持,但尚未逐一进行系统的突变实验验证。此外,方法目前的验证集为 23 个蛋白质,覆盖范围有限,能否推广到内在无序蛋白(IDP)或膜蛋白在脂质双层中的运动,仍有待检验。
通讯作者介绍
Turkan Haliloglu 为本文唯一标注的通讯作者,署名单位为土耳其博阿齐奇大学(Bogazici University)化学工程系与高分子研究中心。她在博阿齐奇大学取得博士学位,后在匹兹堡大学 Ivet Bahar 实验室从事博士后研究,系统接受了弹性网络模型和蛋白质动力学方面的训练。Bahar 实验室是高斯网络模型的发源地,Haliloglu 回到土耳其后建立了自己的研究方向,将 GNM 与信息论工具结合,应用于变构调控机制解析、蛋白质-蛋白质相互作用界面预测和功能位点识别。共同作者 Burak Erman 任职于土耳其科奇大学(Koc University)化学与生物工程系,长期研究聚合物和蛋白质统计力学。
引用
Altintel, B., Acar, B., Erman, B., & Haliloglu, T. (2022). Subsets of Slow Dynamic Modes Reveal Global Information Sources as Allosteric Sites. Journal of Molecular Biology, 434(17), 167644. https://doi.org/10.1016/j.jmb.2022.167644