
SwitchCraft: A Programmatic Framework for Designing State-Switching Proteins
原文链接:全文
作者:Bowen Jing, Mihir Bafna, Anisha Parsan, …, Bonnie Berger
ICML 2026,2026 年
导读
天然蛋白的核心魅力不在于”能折成一个结构”,而在于能在不同条件下切换状态——配体结合后打开活性位点、不同信号分子引发不同构象、酶在催化循环中经历多个中间态。然而,主流蛋白设计方法几乎全部面向单一静态结构,无法指定这种多状态切换行为。
MIT Bonnie Berger 团队提出 SwitchCraft,首个面向多状态蛋白设计的通用可编程框架。它将功能需求写成”状态 + 约束”的可组合程序,通过对结构预测模型 Boltz-1 反向传播来优化序列,使同一条蛋白在不同分子环境下满足不同的结构与功能要求。论文在六类功能原语上验证了框架的通用性,并展示了 de novo 荧光生物传感器设计流程。
一、研究问题
当前蛋白设计有两条主流路线:
蛋白语言模型(PLMs)能生成新序列并继承天然蛋白家族功能,但条件控制粗糙——通常只能靠 family label 或 GO term,很难指定”在 A 条件下是状态 1,在 B 条件下切换到状态 2”这种细粒度功能机制。
结构生成方法(diffusion、flow matching、或通过结构预测模型反向优化序列)擅长设计 binder 和 motif scaffold,但本质上面向单一静态结构,难以表达配体依赖构象变化、状态依赖结合、变构开关等天然蛋白中常见的多状态行为。
SwitchCraft 要回答的核心问题是:能否构建一个通用框架,把”多状态蛋白功能”直接写成程序化约束,然后自动设计出满足这些约束的蛋白序列?
二、方法核心:把蛋白功能设计变成”写程序”
SwitchCraft 的核心思想可以这样理解:
像训练神经网络一样优化蛋白序列——只不过这里的“参数”是待设计蛋白的序列 logits,“数据”是多状态设计规范,“损失函数”是你希望蛋白在各状态满足的结构与结合要求。
这张图想回答:SwitchCraft 如何让同一条蛋白序列在多个状态下同时折叠和优化?
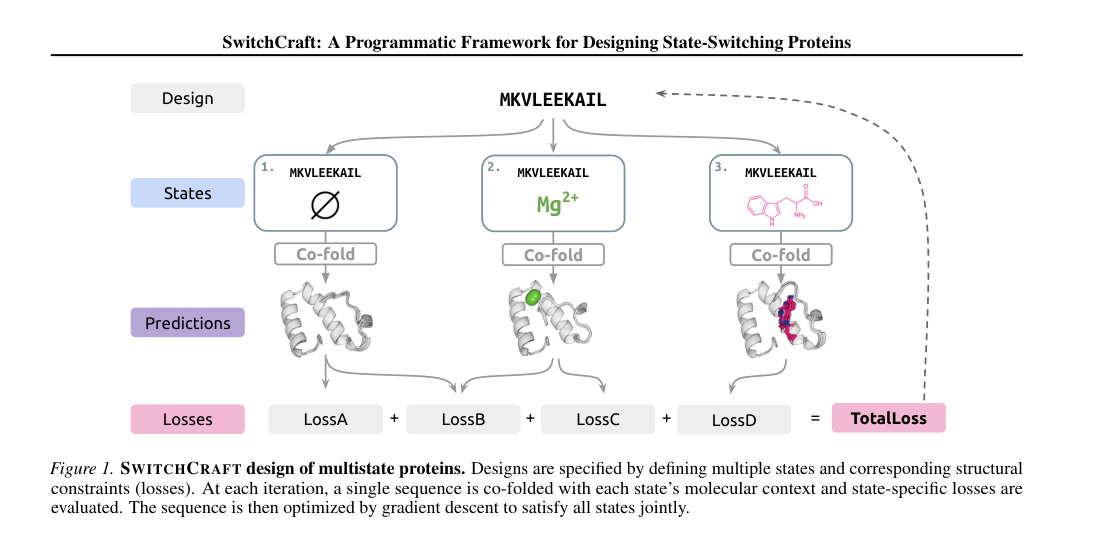
Figure 1|SwitchCraft 框架总览:同一序列在多个 state 下共折叠,计算各 state 的 loss 后联合优化
具体地,一个多状态设计任务由以下元素定义:
多个状态(states):每个状态对应一个 folding context,即该状态下固定存在的分子环境。例如:状态 A 为蛋白单独存在,状态 B 为蛋白 + 小分子 OQO,状态 C 为蛋白 + Ca²⁺。
可组合的损失函数:论文定义了四种核心 loss,每种都可以取”正”或”反”方向:
Motif Loss:让蛋白在某状态下准确 scaffold 一个功能 motif,基于 Boltz-1 distogram 输出计算 motif 残基对的距离误差。Anti-Motif Loss = −0.5 × Motif Loss,反向鼓励 motif 被破坏。
Binding Loss:让蛋白在某状态下结合配体,评价蛋白-配体接触的置信度和概率。Anti-Binding Loss 则要求不结合。
Conformational Change Loss:用 Jensen-Shannon divergence 衡量两个状态间 distogram 差异,要求同一序列在不同状态下内部几何关系显著不同——这是实现状态切换的关键。
Contact Loss:保证每个状态的结构本身紧致可信,作为所有设计任务的默认正则项。
序列优化采用 straight-through estimator(STE)处理 argmax 不可导的问题,并通过四阶段 schedule(共 240 步)从连续探索逐步收敛到离散序列:前 30 步 soft 优化快速探索,中间 200 步分两段:先以 τ=0.5 保持 100 步,再把温度从 0.5 逐渐降到 0.005,使分布尖锐化,最后 10 步用 hard 序列收尾。
三、看图说话
SwitchCraft 最重要的不是某个单一任务,而是组合性——不同任务都可以写成 loss 的程序组合。Figure 2 展示了六种功能原语:
这张图想回答:SwitchCraft 支持的六种功能原语分别描述了什么样的状态切换行为?
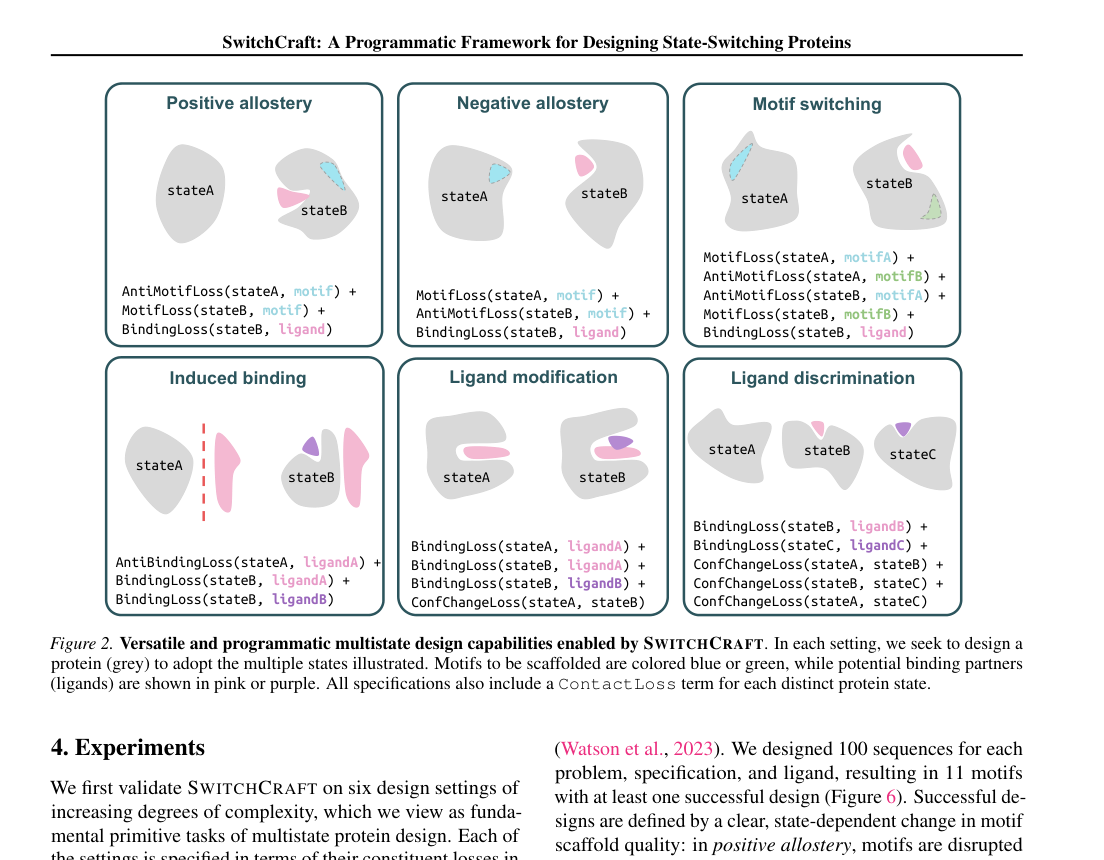
Figure 2|SwitchCraft 支持的六种功能原语,每种都由”状态 + loss 组合”定义
① 正向变构(Positive Allostery):无配体时 motif 被破坏,配体结合后 motif 恢复正确几何——经典的变构激活。
② 负向变构(Negative Allostery):反过来,无配体时功能 motif 正常,配体结合后 motif 被扰乱——变构抑制。
③ Motif Switching:配体使蛋白从 motif A 切到 motif B。需要同时满足四个条件(两个 motif 各有 on/off),比普通变构更难。
④ Induced Binding:只有在 effector 存在时,蛋白才与目标分子结合——条件性相互作用。
⑤ Ligand Modification:感知同一配体的不同化学状态(如 heme vs oxygenated heme),让化学修饰驱动构象变化。
⑥ Ligand Discrimination:三态开关——不同配体(OQO vs Ca²⁺)对应不同构象,实现多输入多状态响应。
这六种任务的关键在于正约束 + 负约束 + 跨状态约束的组合。只有正约束容易得到”两个状态都行”的非特异解;加入负约束(Anti-Motif / Anti-Binding)才真正产生”状态切换”;再加 ConfChangeLoss 防止模型找到”结构几乎相同但都满足约束”的偷懒解。
四、核心贡献总结
正/负变构(最系统的 benchmark):
作者对 24 个 RFDiffusion benchmark motifs × 5 种配体(OQO、FAD、Zn²⁺、Mg²⁺、dsDNA)做系统性设计,每组生成 100 条序列。成功标准要求目标状态 motif RMSD ≤ 1 Å、非目标状态 motif RMSD > 1 Å、同一状态内 5 次预测一致(标准差 ≤ 0.5 Å)。最终 24 个 motif 中有 11 个至少出现一个成功设计,部分案例的状态切换导致 motif RMSD 从 0.5 Å 变到 6–8 Å 以上。
这张图想回答:正向和负向变构设计中,motif 区域在不同配体状态下的开/关切换幅度有多大?
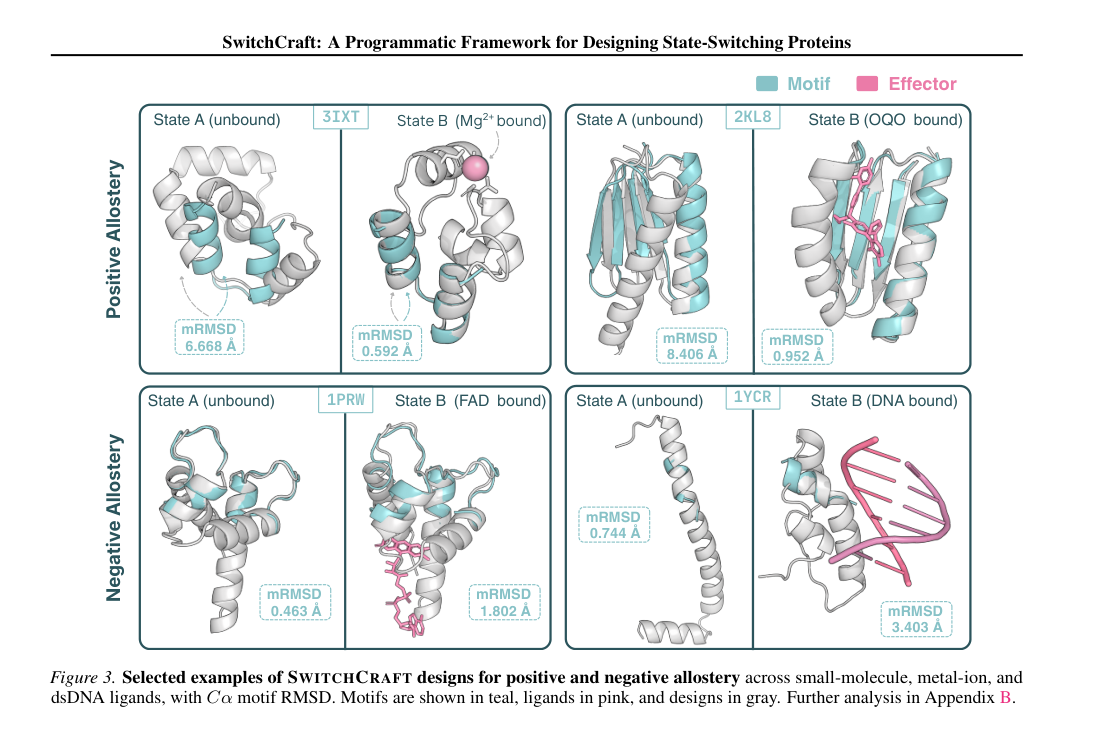
Figure 3|正向/负向变构设计示例:motif(青色)在不同配体状态下的开/关切换
更复杂的功能原语:
这张图想回答:Motif switching、配体修饰和诱导结合这几种高级功能的设计成功率如何?
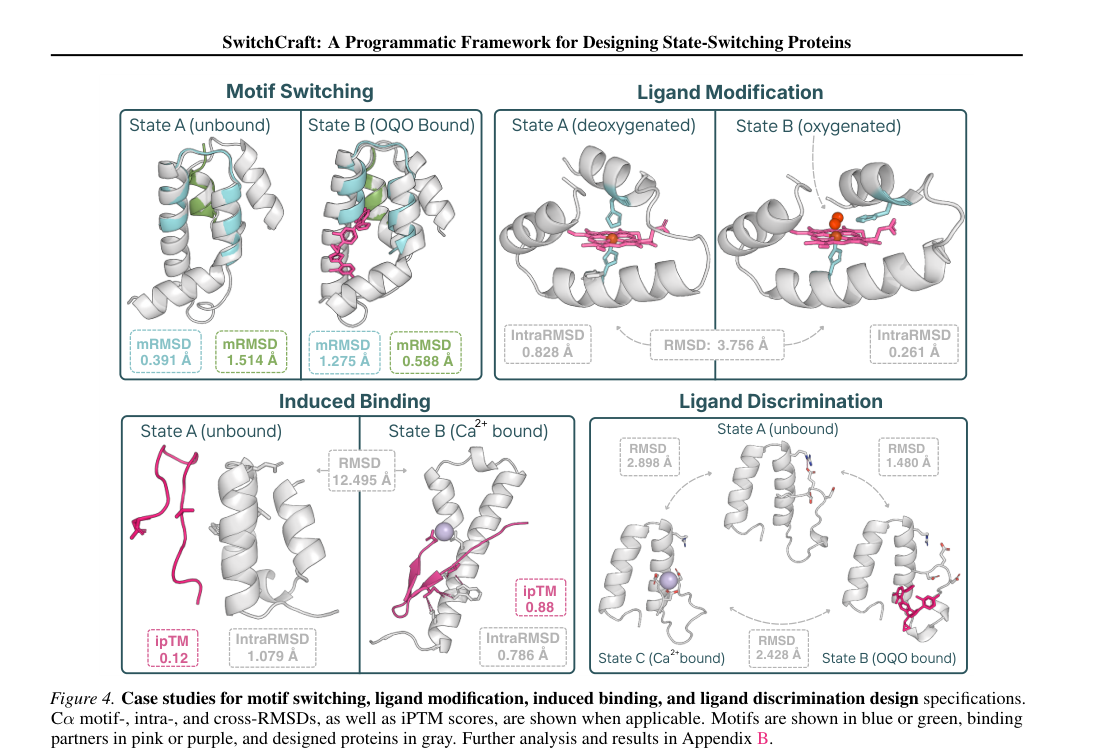
Figure 4|Motif switching、ligand modification、induced binding 和 ligand discrimination 的代表案例
Motif Switching:100 个设计中 3 个实现了两种 motif 的完整互换切换。
Ligand Modification:558 个设计中 10 个成功,代表案例中氧分子进入后诱导 3.8 Å 构象变化,类似血红蛋白的氧结合协同效应。
Induced Binding:940 个设计中 8 个成功。展示案例中,无 Ca²⁺ 时 ipTM = 0.12(不结合),有 Ca²⁺ 时 ipTM = 0.88(强结合),构象变化达 12.5 Å。
Ligand Discrimination:465 个设计中 12 个实现三态区分。代表案例中关键 loop 在三个状态分别形成盐桥(unbound)、疏水口袋(OQO-bound)和钙配位位点(Ca²⁺-bound),任意两态 RMSD > 1.4 Å,各态内部预测一致。
从原语到应用:De novo 荧光生物传感器设计
论文最”应用导向”的部分是 cpGFP-based 荧光生物传感器设计流程。思路是:先用 SwitchCraft 设计一个对任意小分子响应的构象开关蛋白(confswitcher),再插入 circularly-permuted GFP。配体结合引起构象变化,改变 chromophore 周围环境,从而调控荧光信号。
这张图想回答:De novo 荧光生物传感器的设计验证——计算预测的开/关比与实验值一致吗?
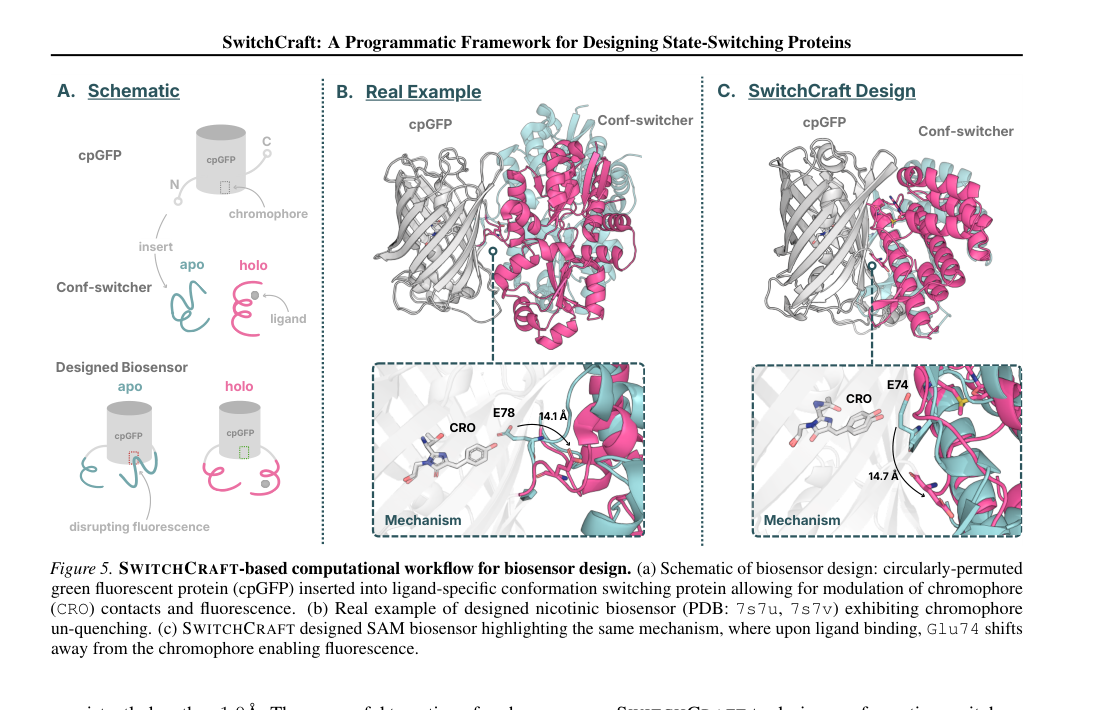
Figure 5|生物传感器设计流程:(A) 原理示意,(B) 已知 nicotine biosensor 的真实机制,(C) SwitchCraft 设计的 SAM biosensor
作者为 SAM、cGMP、ATP 三种小分子设计 confswitcher,共生成 13,858 个序列(长度 150–200 aa)。经过严格筛选(effector iPTM > 0.8、intraRMSD ≤ 1.5 Å、pLDDT > 0.8、crossRMSD > 3 Å、回旋半径 ≤ 22 Å),89 个通过。
在这些 confswitcher 的构象变化最大位点插入 cpGFP 后,44 个通过 chromophore 调控筛选。其中一个 SAM biosensor 展现出与已知 nicotine biosensor 非常类似的”去淬灭”机制:apo 态中 Glu74 接触 chromophore 抑制荧光,配体结合后 Glu74 移开约 14.7 Å,理论上可恢复荧光。
验证与对照
论文的验证体系值得关注,采用了四层证据:
与 RFD3 + TiedMPNN 基线对比:作者构造了一个由 RFDiffusion3 生成结构 + TiedMPNN 进行多状态序列设计的 baseline。SwitchCraft 成功数显著更高,例如 FAD + 6e6r_med 组合中 SwitchCraft 成功 17 个,baseline 为 0。核心原因是不同状态结构不兼容时,tied inverse folding logits 会互相污染。
消融实验:去掉 AntiMotifLoss 后成功率明显下降(如 OQO + 3IXT 从 5 降到 1),证明状态切换不是自然顺带出现的,必须用负约束显式监督。
交叉筛查:用 positive allostery 目标设计的序列中正变构出现 259 次、负变构仅 22 次(fold change 3.01×,p = 2.9×10⁻²¹),反过来也成立,说明 loss 目标确实在驱动期望行为。
初步湿实验验证:附录报告了锌诱导的 PD-L1 binders——无 Zn²⁺ 时不结合,加 Zn²⁺ 后检测到结合,部分 Kd 达亚微摩尔级(746 nM)。虽然样本量小,但说明至少部分设计在真实体系中表现出了条件性结合。
五、局限与展望
几乎全部核心结论仍是 in silico:论文证明的是”在 Boltz-1 的预测世界里,这些多状态设计可以实现”。真实蛋白能否稳定表达、正确折叠、可逆切换、具有合适的热力学/动力学平衡,尚未系统验证。
动力学与路径可达性未被约束:两态都低能/可预测,不代表蛋白能从状态 A 自然切到状态 B。部分设计可能需要先完全解折叠再重新结合,作者在 ligand modification 部分也承认存在”看起来需要解离再重绑”的不现实路径。
绝对成功率仍较低:motif switching 3/100、induced binding 8/940、ligand discrimination 12/465。框架已证明可行性,但距离高通量可靠工程化还有距离。
对结构预测模型高度依赖:整个框架优化的是”让 Boltz-1 相信这个机制成立”,而 Boltz-1 在某些 ligand、离子、DNA 界面上的建模偏差可能误导设计。
总体而言,SwitchCraft 是一篇开创范式的 framework paper。它最重要的贡献是提出了一种新的问题表述——蛋白功能设计可以通过”多状态 + 可组合约束 + 可微优化”来实现,把蛋白设计从”画一个静态结构”推进到”编写一个分子机制”。未来最值得关注的方向包括:引入能量景观/动力学约束、扩展到原子级功能位点约束、以及实现 AND/OR/NOT 分子逻辑门等更复杂逻辑。
通讯作者介绍
本文通讯作者为 Bowen Jing、Mihir Bafna 和 Bonnie Berger,均来自麻省理工学院(MIT)。Bonnie Berger 是 MIT 数学系 Simons Professor,同时在 CSAIL(计算机科学与人工智能实验室)领导 Computation and Biology 研究组。她在计算生物学和生物信息学领域有超过三十年的研究经验,长期关注序列分析、基因组隐私、单细胞数据分析等方向,是计算生物学领域最具影响力的学者之一。Bowen Jing 是 MIT CSAIL 博士生,研究方向为几何深度学习与蛋白质设计,此前在蛋白结构预测与生成模型方面有多项代表性工作(如 ProDiT)。Mihir Bafna 同为 MIT CSAIL 博士生,与 Jing 并列第一作者。本文的合作者还包括 UT Austin 计算机系的 Adam Klivans 教授和 MIT 生物工程系的 Bryan Bryson 教授。
引用
Jing, B., Bafna, M., Parsan, A., Ni, H. M., Kwabi-Addo, D., Bryson, B., … & Berger, B. (2026). SwitchCraft: A Programmatic Framework for Designing State-Switching Proteins. ICML 2026. https://doi.org/10.48550/arXiv.2605.31236